Artículo Original /Original Article
DOI: https://doi.org/1056152/StevianaFacenV17N2A1_2025
Distribución
potencial de especies nativas de Passiflora L. (Passifloraceae) en Paraguay: implicaciones para la conservación y recolección de germoplasma
 Pereira-Sühsner, C. D.1* ; Daviña,
JR.2 ; Honfi, A.
I.2
1Lababoratrio de Recursos Vegetales, Facultad de Ciencias
Exactas y Naturales-UNA, San Lorenzo, Paraguay
2Programa de Estudios Florísticos y Genética Vegetal,
Instituto de Biología
Subtropical (CONI-CET-UNaM) nodo Posadas, Facultad
de Ciencias Exactas,
Químicas y Naturales, Posadas, Argentina
*autor por correspondencia: clauddinha_7@hotmail.com
|
|
 |
Distribución potencial de especies nativas de
Passiflora L. (Passifloraceae) en Paraguay: implicaciones para la conservación y recolección de germoplasma. El género Passiflora representa una parte significativa de la flora neotropical, y en Paraguay
se han documentado 22 especies
nativas pertenecientes a los subgéneros Passiflora (13 especies)
y Decaloba (9 especies). En este estudio se generaron modelos de distribución potencial
mediante el algoritmo
MaxEnt, utilizando 19 variables
bioclimáticas y un total de 369 registros de presencia provenientes de
colecciones de herbario. Los modelos mostraron alta capacidad predictiva, con
valores de AUC superiores a 0,8 en el
95% de las especies modeladas, incluso
en casos con menos de cinco registros. La superposición analítica
de los modelos permitió
identificar patrones de distribución diferenciados entre subgéneros: Passiflora mostró mayor amplitud
ecológica y ocupación
en la Región Oriental y el Chaco, mientras que Decaloba se concentró en ambientes húmedos
del oriente del país. También
se identificaron zonas de alta riqueza
específica y regiones prioritarias para la conservación, como el Bosque
Atlántico del Alto Paraná, centro-sur de Caazapá
y sectores del Chaco húmedo
y seco, muchas
de ellas con baja representatividad en el sistema nacional
de áreas protegidas. Este trabajo proporciona una herramienta estratégica para
la planificación de acciones de conservación, recolección de germoplasma y
monitoreo de especies nativas de Passiflora en
Paraguay, especialmente en regiones con vacíos de información y escasa documentación botánica.
Palabras clave: áreas prioritarias de conservación, diversidad vegetal, ecorregiones, recursos
genéticos
Potential distribution of native Passiflora
L. species (Passifloraceae) in Paraguay: implications for conservation and germplasm collection.The genus
Passiflora represents a significant portion of the Neotropical flora,
with 22 native species documented in Paraguay, belonging to the subgenera Passiflora
(13 species) and Decaloba (9 species). In this study, potential
distribution models were generated using the MaxEnt algorithm, based on 19 bioclimatic variables and a total
of 369 presence records derived from herbarium collections. The models
demonstrated high predictive performance, with AUC values exceeding 0.8 for 95%
of the modeled species, even in cases with fewer than five records. Analytical overlay of the models revealed distinct
distribution patterns between subgenera: Passiflora exhibited broader ecological amplitude and occupancy
across both the Region Oriental
and the Chaco, while Decaloba was
concentrated in humid environments in the eastern
part of the country.
Areas of high species richness
and priority regions
for conservation were also identified, including the
Atlantic Forest of Alto Paraná, south-central of Caazapá, and certain sectors
of both humid and dry Chaco, many of which show low representation within the
national system of protected areas. This work
provides a strategic tool for planning
conservation actions, germplasm collection, and monitoring of native Passiflora species
in Paraguay, particularly in regions with information gaps and limited botanical
documentation.
Keywords: conservation priority areas, plant diversity, ecoregions, genetic resources
Steviana, Vol. 17 (2), 2025 pp.05-30. Original recibido el 18/08/2025
Aceptado el 12/12/202
INTRODUCCIÓN
El género Passiflora L.
(Passifloraceae Juss. ex Roussel) comprende alrededor de 575 especies
distribuidas principalmente en regiones tropicales de América (Killip, 1938;
Ulmer y McDougal, 2004; Borges et al., 2020). Varias de las especies poseen un alto valor
económico, ornamental, alimenticio y medicinal, además de brindar servicios
ecosistémicos como la polinización, lo que ha despertado un creciente interés en su conservación y
aprovechamiento sostenible (Feuillet y MacDougal, 2003;
Dhawan et al., 2004; Popak y Markwith, 2019;
Zhang et al., 2023).
Paraguay se encuentra en el centro de América del Sur, sin salida al mar,
limita con Brasil al norte y este,
Argentina al sur y sureste,
y Bolivia al noroeste. El
territorio está atravesado por dos grandes ríos: Paraná y Paraguay, y se divide
en dos regiones geográficas principales: Oriental y Occidental o Chaco, cada una con características
climáticas y ecológicas diferenciadas. La Región
Oriental presenta un clima tropical con estaciones bien marcadas: cálido y
lluvioso en verano, fresco y seco en invierno. Su altitud varía entre 50 y 800 metros
sobre el nivel
del mar, destacándose la Sierra de Amambay y
Sierra de Ybyturuzú como las zonas más elevadas. En contraste,
la Región Occidental o Chaco posee un clima semiárido
y cálido, con temperaturas que en verano superan los 40 °C y precipitaciones irregulares que
generan periodos de sequía; en invierno, las temperaturas descienden
ligeramente. La altitud promedio en esta región oscila entre 100 y 200 metros
sobre el nivel del mar.
En este contexto geográfico, se han registrado en
Paraguay al menos 22 especies nativas del género, pertenecientes a los
subgéneros Decaloba (DC.) Rchb. y Passiflora L. (Pereira Sühsner et
al., 2022). Las especies del subgénero Decaloba, son P.
capsularis L., P. misera Kunth, P. morifolia Mast., P. organensis
Gardner, P. pohlii
Mast., P. suberosa L., P. transversalis Milward de
Azevedo, P. tricuspis Mast. y P. urnaefolia Rusby. El subgénero Passiflora
está comprendido por P. alata Curtis, P. amethystina J.C. Mikan,
P. caerulea L., P. chrysophylla Chodat, P. cincinnata Mast., P. edulis Sims, P. eichleriana Mast.,
P. foetida L., P. giberti N.E. Br., P. lepidota Mast., P. mooreana Hook., P. palmatisecta Mast.
y P. tenuifila Killip.
Entre las especies registradas, varias como P. alata, P. edulis, P.
caerulea y P. cincinnata poseen un alto valor alimenticio y/o
farmacéutico, lo que las convierte en recursos estratégicos para el desarrollo sostenible del país. En particular, P. edulis que presenta distribución
natural en Paraguay y es ampliamente utilizada
a nivel global en la
producción de jugos, extractos medicinales y productos derivados, lo que
refuerza su importancia como recursos
biológicos de alto valor. La valorización de estos recursos
biológicos nativos no solo contribuye a la diversificación productiva y al bienestar
comunitario, sino que también fortalece las acciones de conservación y
uso sostenible de la biodiversidad nacional,
en un contexto de creciente presión ambiental y cambio climático. A
pesar de su importancia ecológica y potencial fitofarmacéutico, la información
sobre la distribución geográfica y el estado de conservación de estas especies
es limitada. Los registros disponibles se concentran en zonas donde se ha
realizado mayor esfuerzo de colecta, lo que deja amplias áreas sin datos y
restringe la comprensión de su distribución real y potencial.
En este contexto, los modelos de distribución
geográfica basados en análisis del nicho ecológico de las especies han emergido
como herramientas fundamentales para predecir la presencia
potencial de especies en áreas no muestreadas (Segura et al., 2003;
Phillips et al., 2006; Elith y
Leathwick, 2009; Ocampo et al., 2010; Milward de Azevedo et al.,
2018). En particular, los modelos predictivos permiten compensar la carencia de
datos en áreas remotas o de difícil acceso, optimizando recursos y esfuerzos de
recolección (Seoane y Bustamante, 2001; Savino et al., 2014). La utilización de registros de herbario
como base para estos modelos ha sido ampliamente validada como una estrategia
eficaz para estimar patrones de distribución y riqueza (Villaseñor y Téllez-Valdés, 2004).
El modelo de máxima entropía (MaxEnt) ha demostrado un alto desempeño
predictivo, incluso con datos
escasos y únicos
de presencia, siendo
ampliamente utilizado para delinear áreas prioritarias de conservación y planificación
ecológica (Phillips et al., 2006; Scheldeman et al., 2007; Gil y
Lobo, 2012; Tamina y Cuentas, 2015). Además, MaxEnt permite trabajar con datos
ambientales categóricos o continuos, es robusto frente a errores de
georreferenciación, y su salida incluye herramientas como el AUC y la prueba de Jackknife para validar
los modelos generados (Baldwin, 2009; Cruz-Cárdenas et
al., 2014).
La identificación de áreas prioritarias de conservación
se realiza corrientemente detectando áreas de alta riqueza específica para
muchas especies de distintas familias botánicas (Chávez González et al.,
2015) o bien, de acuerdo con la identificación
de áreas de alta diversidad vegetal para un conjunto de especies particulares (Pennington et
al., 2005; Ceballos et al., 2010). La superposición de modelos de
distribución basados en algoritmos de análisis permite
estimar patrones de riqueza
específica y detectar regiones con alta concentración de especies. En Paraguay
se han identificado varias áreas prioritarias para la conservación dentro de su marco institucional,
como parte de la Política Nacional de Biodiversidad y el Sistema Nacional de
Áreas Silvestres Protegidas (MADES, 2025). Sin embargo, aunque estas zonas
están orientadas a la protección de hábitats clave para la fauna y flora más emblemática del país, las especies de Passiflora aún no han sido específicamente analizadas dentro de estos esfuerzos de conservación.
Finalmente, la distribución de las especies
de Passiflora en Paraguay
puede verse afectada
por factores vinculados al cambio climático, como el incremento
significativo de la temperatura y las alteraciones en los patrones de
precipitación, los cuales podrían modificar la idoneidad ecológica de sus
hábitats (CEPAL, 2014). A estos efectos se suman presiones antropogénicas como
la deforestación, el avance de la frontera agrícola y la fragmentación del paisaje, que reducen la conectividad entre
poblaciones y aumentan la vulnerabilidad de aquellas especies con rangos de
distribución restringidos. La interacción entre
estos factores compromete la persistencia de varias
especies nativas, en especial aquellas con requerimientos ecológicos específicos o limitada
capacidad de dispersión, lo que resalta
la necesidad de evaluar su distribución potencial y
fortalecer las estrategias de conservación.
Los objetivos de este
trabajo fueron i) modelar la distribución geográfica potencial de especies nativas
del género Passiflora de Paraguay, ii) analizar la influencia de las variables ambientales bioclimáticas e iii) identificar vacíos de colecta, patrones de riqueza específica
potencial, y zonas prioritarias para la conservación biológica de estos
recursos genéticos.
MATERIALES Y MÉTODOS
Registros del género
Passiflora
Se compilaron registros de distribución del género Passiflora en Paraguay a partir de 369 especímenes de herbario depositados en los principales herbarios nacionales: FACEN
(Facultad de Ciencias Exactas
y Naturales, Universidad Nacional de Asunción),
FCQ (Facultad de Ciencias Químicas, UNA), Museo de Historia
Natural del Paraguay (PY) y
Sociedad Científica del Paraguay (SCP). Adicionalmente, fueron consultados
ejemplares digitalizados procedentes de Paraguay, disponibles en colecciones internacionales de los herbarios MNES, CTES, SI, NYBG, G, MO y
BCN (Thiers, 2021), y en las plataformas GBIF (2021) y PyBIO (2021).
Se realizaron colectas de campo en los meses de junio,
agosto, septiembre y noviembre de 2012; marzo de 2013; octubre
a diciembre de 2017; febrero de 2018; marzo, abril,
agosto, noviembre y diciembre
de 2019; y febrero de 2020.
Estas actividades aportaron
87 registros adicionales correspondientes a 13 especies, provenientes
delos departamentos Central,
Cordillera, Guairá, Caazapá,
Presidente Hayes y Boquerón. Los especímenes
recolectados fueron incorporados al Herbario FACEN como respaldo documental, y parte del material
vivo se conserva en condiciones controladas en el Jardín de Aclimatación de la FCQ-UNA, San Lorenzo
- Paraguay, como estrategia complementaria de conservación ex
situ.
Se efectuó la determinación taxonómica de las colecciones realizadas
y se verificó la identidad de las colecciones realizadas según Pereira Sühsner
et al. (2022), Killip (1938), Ulmer y
MacDougal (2004) y Feuillet y MacDougal (2004), sobre la base de observaciones macro y microscópicas de las partes vegetativas y reproductivas
mediante microscopio estereoscópico. Cada ejemplar fue registrado en una base
de datos junto con sus datos de procedencia y geo-localización. La base fue
depurada mediante la eliminación de duplicados, errores geográficos y registros dudosos.
Modelado de distribución potencial
Se seleccionaron 22 especies con un número mínimo de registros georreferenciados aceptable para la ejecución
del modelo en MaxEnt (Phillips et al., 2006), incluyendo
tanto especies amplia-mente representadas como otras con registros escasos. En el caso de estas últimas, los
resultados fueron interpretados con precaución debido a las limitaciones del algoritmo para
estimar adecuadamente la distribución potencial con tamaños
de muestras muy reducidos. Por ello, los modelos generados deben
considerarse como aproximaciones exploratorias más que como predicciones robustas.
El modelado de distribución potencial se realizó mediante
el algoritmo de máxima entropía del software MaxEnt versión 3.3.3 (Phillips et
al., 2006). Se emplearon 19 variables bioclimáticas de WorldClim versión
1.4 (resolución: 30 arc-seconds ≈ 1 km²), basadas en promedios mensuales de temperatura y precipitación (WorldClim, 2021). Estas variables fueron
procesadas y gestionadas mediante DIVA-GIS (Hijmans et al., 2012) para
su adecuación al área de estudio, lo que incluyó
el recorte espacial
de las capas ráster, la conversión de formato y verificación de la
consistencia espacial entre
las capas ambientales y los registros de presencia antes de su ingreso al modelo. Los modelos se generaron
utilizando la configuración por defecto de MaxEnt.
Para evaluar su calidad, se emplearon los valores del Área Bajo la Curva (AUC) y las pruebas de Jackknife. Se consideraron valores de AUC ˂0,7;
0,7 ≥ AUC ˂ 0,8; 0,8 ≥
AUC ≤ 0,9; AUC ˃ 0,9,
como indicativos de modelo pobre, buena, muy
buena y excelente calidad predictiva respectivamente (Mezaour, 2005). Además, la contribución de cada
variable ambiental fue estimada directamente por el algoritmo MaxEnt mediante
análisis de ganancia y permutación, lo que permitió identificar las variables más
influyentes en la distribución potencial de cada especie.
Los resultados se organizaron por subgénero (Passiflora y
Decaloba) y se exportaron a QGIS
versión 3.40 (QGIS Development Team, 2025) para la visualización de los mapas.
La superposición espacial
de los modelos con las ecorregiones
de Paraguay se analizó según la clasificación de Dinerstein et al. (2017),
y se evaluó la cobertura de las especies modeladas respecto del sistema
nacional de áreas protegidas públicas, privadas y mixtas de Paraguay. Se definieron cuatro niveles de cobertura: alta (≥3 áreas),
media (2 áreas), baja (1 área) y sin cobertura
(ausencia total en áreas protegidas).
Para analizar los patrones de riqueza específica potencial,
se generaron mapas binarios de presencia/ausencia (probabilidad ≥ 0,5) a
partir de los modelos de MaxEnt. La superposición de estos mapas por subgénero
permitió calcular el número de especies con presencia potencial en cada celda,
generando así mapas de riqueza para cada subgénero. Los mapas fueron elaborados
y visualizados con QGIS v. 3.40 (QGIS Development Team, 2025). Además,
se identificaron zonas prioritarias de conservación para especies de Passiflora con
distribución en Paraguay.
RESULTADOS
Distribución general y representatividad
en áreas protegidas de especies nativas de Passiflora
Los modelos de distribución geográfica potencial de 22
especies nativas del género Passiflora,
pertenecientes a los subgéneros Passiflora y Decaloba, se desarrollaron
considerando los registros de distribución real conocidos y las variables bioclimáticas. Según los datos analizados,
estas especies están presentes principalmente en seis ecorregiones del país: Chaco seco (22,73 %), Pantanal (13,64 %), Chaco húmedo (63,64 %),
Cerrado (45,45 %), Pastizales de la Mesopotamia (54,55 %) y Bosque Atlántico del Alto Paraná (77,27 %) (Tabla 1,
Figuras 1, 2).
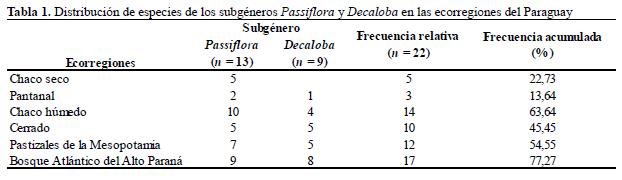
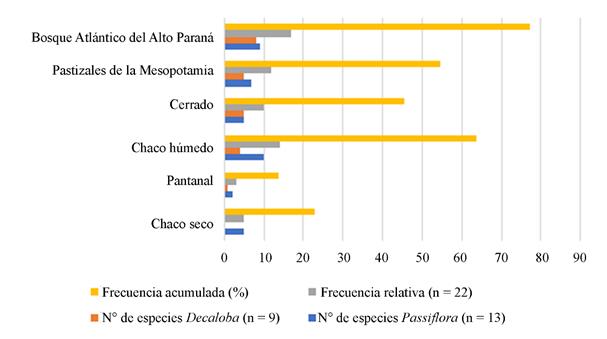
Figura1. Frecuencia
relativa y acumulada, número de especies de los subgéneros Decaloba y Passiflora
en Paraguay
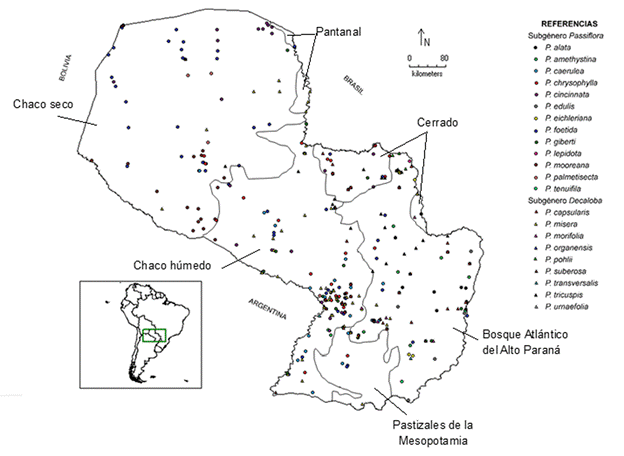
Figura 2. Distribución geográfica registrada de
especies de los subgéneros Decaloba y Passiflora en Paraguay,
diferenciada por ecorregión
Se identificaron tres especies con distribución
restringida a una sola ecorregión: P. palmatisecta en
el Chaco seco, P. organensis y P. pohlii en el Bosque Atlántico del Alto Paraná (Tabla
2). El 91% de las especies analizadas
se encuentran incluidas en alguna unidad de conservación del sistema de áreas
protegidas de Paraguay, con distintos regímenes de protección, sea en áreas
públicas, privadas o mixtas (Figura 3, Tabla 2).
Tabla 2. Presencia de las
especies de los subgéneros Passiflora y Decaloba en
áreas protegidas de Paraguay
Especie Subgénero Cobertura en Áreas protegidas
P. alata Passiflora Alta
P. amethystina Passiflora Alta
P. caerulea Passiflora Alta
P. chrysophylla Passiflora Alta
P. cincinnata Passiflora Alta
P. edulis Passiflora Media
P. eichleriana Passiflora Alta
P. foetida Passiflora Alta
P. giberti Passiflora Alta
P. lepidota Passiflora Baja
P. mooreana Passiflora Media
P. palmatisecta Passiflora Media*
P. tenuifila Passiflora Alta
P. capsularis Decaloba Alta
P. misera Decaloba Alta
P. morifolia Decaloba Alta
P. organensis Decaloba Sin cobertura**
P. pohlii Decaloba Sin cobertura**
P. suberosa Decaloba Alta
P. transversalis Decaloba Alta
P. tricuspis Decaloba Alta
P. urnaefolia Decaloba Alta
Nota: *Restringida a
la ecorregión Chaco seco; **Restringida a la Cordillera de Amambay, ecorregión
Bosque Atlántico del Alto Paraná
La mayoría de las especies
analizadas se encuentran en la categoría de cobertura alta, lo cual indica una buena representatividad
del género Passiflora en el sistema de áreas protegidas del país (Tabla
2). No obstante, también se registran
especies de cobertura media (P. edulis, P. mooreana, P. palmatisecta), baja (P. lepidota) y sin ningún tipo de protección (P. organensis, P.
pohlii), reflejando una diversidad de condiciones ecológicas y/o de inserción en el sistema
de conservación.
En términos de cobertura, las
especies del subgénero Passiflora se distribuyen de manera más
equilibrada entre las distintas categorías de protección, mientras que las del
subgénero Decaloba se concentran en los extremos: algunas están
altamente protegidas, mientras que otras están totalmente sin protección
(Figura 3). Esta disparidad sugiere la necesidad de enfoques de manejo y
conservación diferenciados para cada grupo taxonómico.
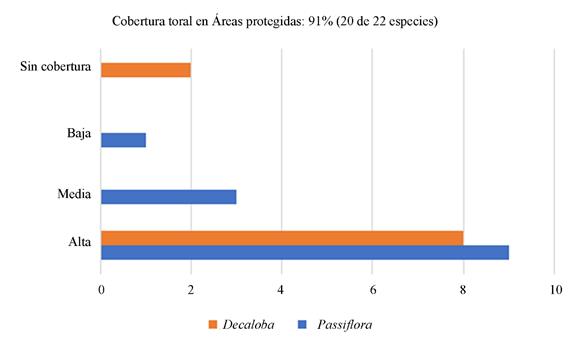
Figura 3. Número de especies de los subgéneros Passiflora
y Decaloba en cada categoría de cobertura, sobre un total de 22 especies
analizadas
Modelos de distribución geográfica
potencial para el subgénero Passiflora
Los modelos generados para las
13 especies del subgénero Passiflora nativas de Paraguay mostraron un
desempeño elevado, con valores del Área Bajo la Curva
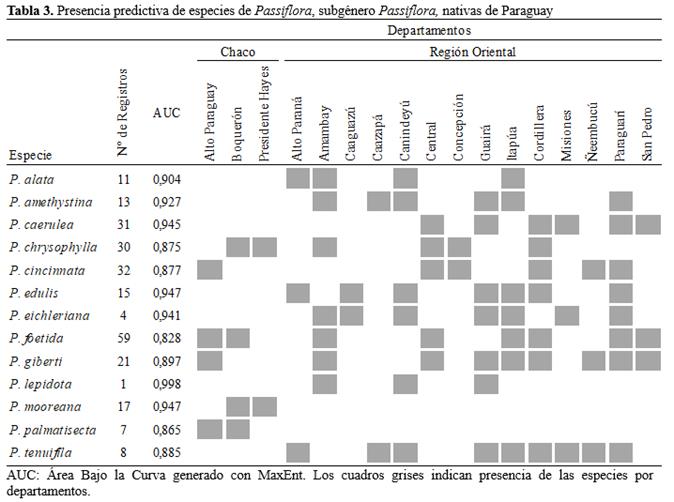
(AUC) que oscilaron entre 0,828 (P. foetida) y 0,998 (P. lepidota), que indican una capacidad predictiva muy buena a excelente incluso en casos con escasos
registros (Tabla 3). Las especies modeladas con más de 20 registros, como P. foetida
(59 registros), P. caerulea (31) y P. cincinnata (32), alcanzaron
AUCs de 0,828, 0,945 y 0,877, respectivamente (Tabla 3). En tanto,
especies raras, con menor número de registros, como P. lepidota (1), P.
eichleriana (4) y P. palmatisecta (7), también evidenciaron altos valores de AUC (0,998, 0,941 y 0,865) (Tabla 3).
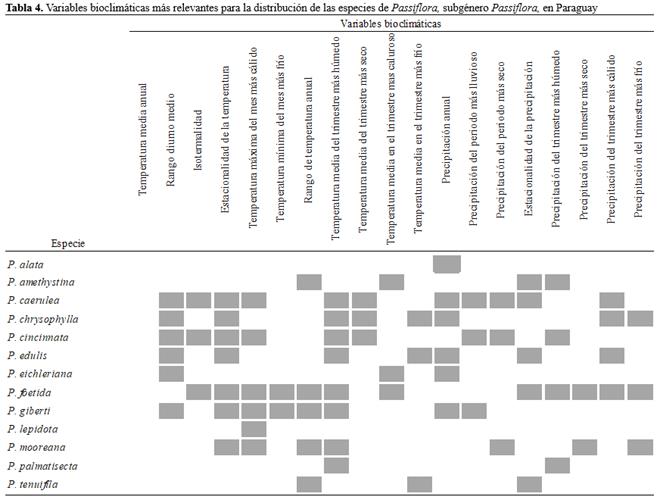
El análisis de la contribución de variables ambientales reveló patrones diferenciados
entre especies. Algunas estuvieron fuertemente influenciadas por variables térmicas,
como P. giberti y P. lepidota, donde la amplitud térmica diaria y temperatura máxima
del mes más cálido fueron determinantes (Tabla 4). En contraste, especies como P. mooreana y P. palmatisecta respondieron principalmente a variables hídricas, particularmente
a las precipitaciones del trimestre más seco
y precipitaciones del trimestre más húmedo,
respectivamente (Tabla 4).
En P. foetida, el modelo
señaló la influencia combinada de la temperatura mínima del mes más frío, las
precipitaciones y estacionalidad térmica, indicando tolerancia a ambientes variables
(Tabla 4). En P. tenuifila, la temperatura media en el trimestre
más frío se destacó como la
variable con mayor importancia por permutación
(95,1%) (Tabla 5). Existen una o dos variables bioclimáticas con ≥70% de contribución en la predicción, en P. alata, P. lepidota, P. mooreana, P. palmatisecta y P. tenuifila,
lo que sugiere nichos ecológicos particularmente estrechos o una marcada
especialización ecológica (Tabla 5). Este patrón indica que los rangos de
distribución están condiciona-dos por requerimientos ambientales específicos,
lo que puede reflejar adaptaciones evolutivas a condiciones locales
particulares. La fuerte dependencia de pocas variables relacionadas con la temperatura y precipitación podría
señalar una sensibilidad frente a fluctuaciones climáticas, con
implicancias relevantes para su conservación, especialmente en escenarios de cambio climático.
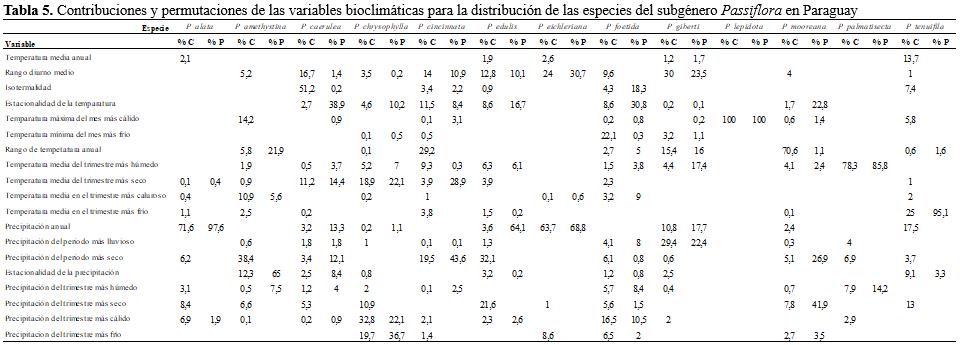
Referencias: % C, porcentaje de concentración; % P, porcentaje de permutación
Distribución espacial y patrones de
riqueza del subgénero Passiflora
Las 13 especies del subgénero Passiflora,
revelaron patrones espaciales diversos en extensión y localización (Figura 4).
El 77% de las especies presentaron distribución potencial en las ecorregiones
Chaco Húmedo, 69% en el Bosque Atlántico del
Alto Paraná, 53% en los Pastizales
de la Mesopotamia, 38% en el Cerrado, 38% en el Chaco seco, y 15% en el
Pantanal (Tabla 6). Asimismo, el 92% de las especies presentan distribución potencial
dentro de áreas protegidas
públicas, 38% en áreas privadas y 23% en áreas mixtas (Tabla 6).
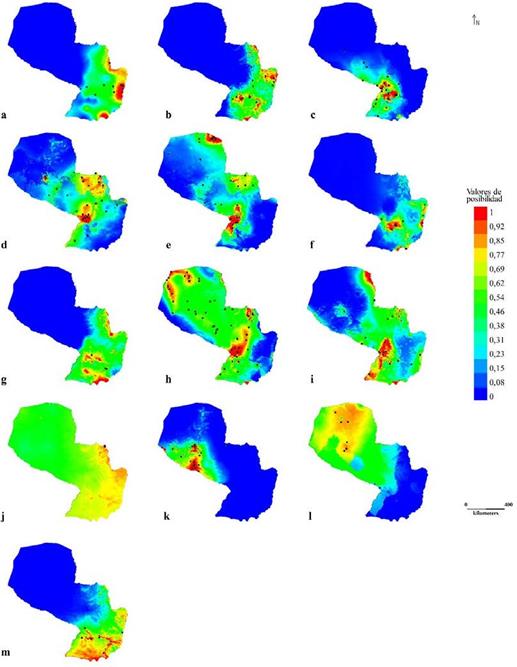
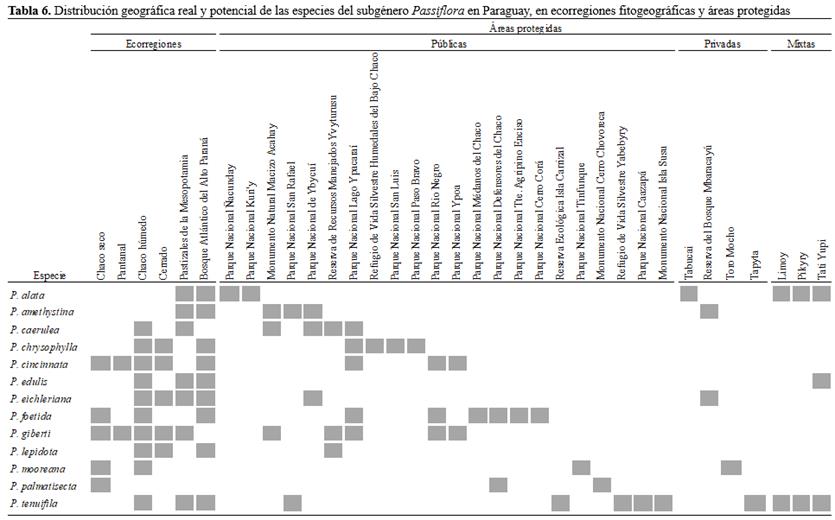
Figura 4. Mapas de distribución potencial generados
con MaxEnt para las 13 especies del subgénero Passiflora en Paraguay.
Los cuadros negros indican los sitios de colección
botánica de ejemplares. a. P. alata; b. P. amethystina;
c. P. caerulea;
d. P. chrysophylla; e. P. cincinnata;
f. P. edulis; g. P. eichleriana; h. P.
foetida; i. P. giberti; j. P. lepidota; k.
P. mooreana;
l. P. palmatisecta; m. P. tenuifila
Las regiones con mayor
idoneidad ambiental para especies de Passiflora se concentraron en el Chaco Húmedo, seguido del Bosque
Atlántico del Alto Paraná, y en menor medida, en los Pastizales de la Mesopotamia. Especies como P. caerulea, P. cincinnata y
P. foetida mostraron una amplia
distribución potencial, abarcando múltiples ecorregiones y
alcanzando altos niveles de probabilidad en el oeste y centro de la región
Oriental (Figuras 4c, e, h). Por el contrario, especies como P. palmatisecta,
P. lepidota y P. mooreana exhibieron distribuciones restringidas (Figuras 4j-l). Passiflora palmatisecta y P. mooreana
presentaron núcleos de alta probabilidad en sectores muy localizados del Chaco seco y sur del
Chaco húmedo, que sugieren requerimientos ambientales específicos
para ambas especies (Figuras 4k-l). En tanto, P. lepidota mostró un
núcleo aislado de alta idoneidad en el noreste de la región Oriental (Figura
4j). Especies como P. edulis y P. amethystina revelaron una
distribución potencial menos extensa en comparación con especies generalistas (Figuras
4b, f), aunque sus áreas potenciales de
ocurrencia se superponen en regiones del departamento de Caazapá y Alto Paraná,
caracterizadas por alta humedad y temperaturas moderadas.
Las zonas con alta probabilidad de presencia
sin registros conocidos, especialmente en el Chaco Central, el norte de San
Pedro y áreas de transición entre la Región Oriental y Occidental, representan áreas clave para futuras misiones de
coleta de germoplasma y prospección florística (Figuras 4a-m).
Existen áreas de superposición o coexistencia de especies
en el oeste-suroeste, norte-noreste y sur de la región Oriental. Las zonas de
alta riqueza específica potencial, identificadas mediante
la superposición de modelos de distribución, corresponden a regiones donde,
bajo condiciones ambientales
favorables, se estima que podrían coincidir espacialmente seis o más especies
del subgénero Passiflora. Esta coexistencia sugiere la presencia de
hábitats con alta heterogeneidad ambiental y disponibilidad de recursos, lo que las convierte en áreas prioritarias para
estudios ecológicos, conservación y colecta de germoplasma (Figura 5).
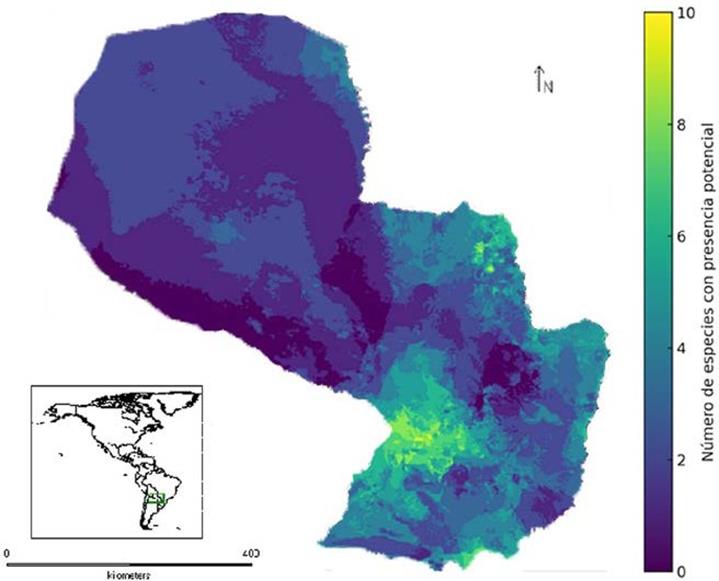
Figura 5. Mapa de riqueza potencial
generado a partir de la superposición de los modelos de distribución de 13
especies del subgénero Passiflora
nativas de Paraguay.
Cada celda representa la suma de especies
cuya distribución potencial predicha
por MaxEnt supera un umbral de probabilidad ≥ 0,5. Este mapa no
representa ocurrencias
reales, sino zonas de idoneidad ecológica derivadas de modelos
predictivos. Los puntos de presencia utilizados para generar los modelos se muestran en la Figura 4
Modelos de distribución potencial para el subgénero Decaloba
Los modelos de distribución de
las especies del subgénero Decaloba nativas de Paraguay mostraron valores de AUC que oscilaron entre 0,833 (P. misera) y 0,979 (P.
pohlii), reflejando una muy buena a excelente capacidad predictiva incluso
para especies con pocos registros (Tabla 7).
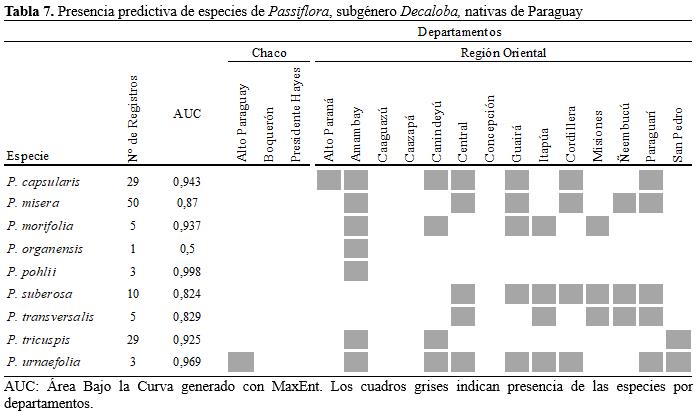
En contraste, P. organensis, con un único registro, mostró un AUC de 0,5, indicando
un modelo pobre, posiblemente debido a la calidad ambiental y la representatividad del punto de ocurrencia. Especies como P. misera (50
registros), P. capsularis (29) y P. suberosa (10), que cuentan con una mayor cantidad de registros,
mostraron distribuciones más amplias y estables,
mientras que otras, como P. pohlii (3)
y P. urnaefolia (3), con registros limitados, presentaron predicciones más restringidas, pero igualmente
informativas en términos
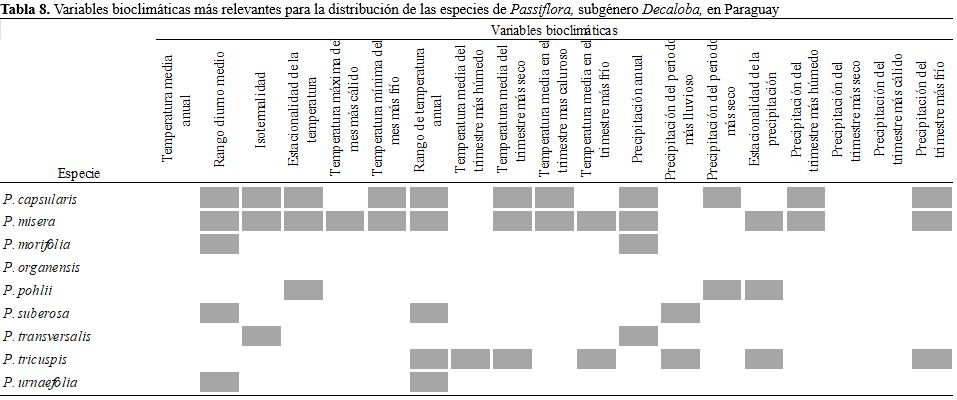
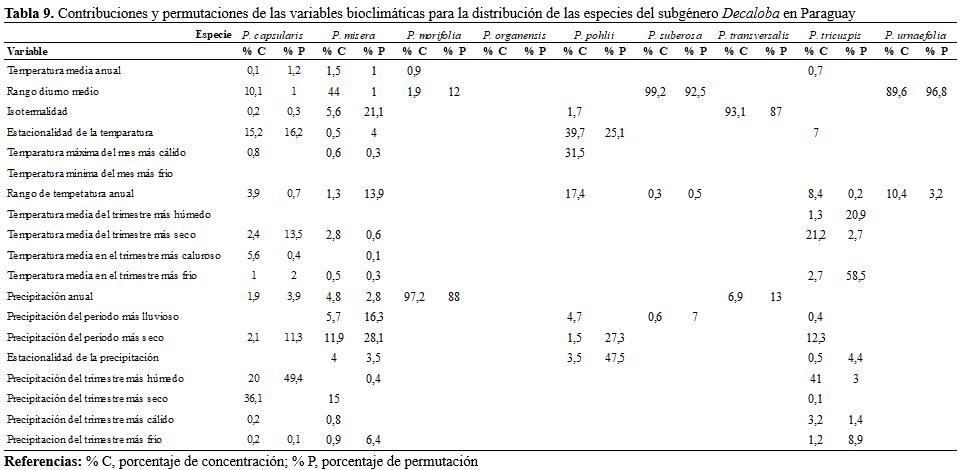
de idoneidad ambiental. Bioclimáticamente se identificaron patrones particulares en varias especies (Tabla 8). En P. suberosa, la amplitud térmica
diaria fue determinante, explicando el 99,2%
del modelo y con una importancia por permutación del 92,5%
(Tabla 9). Del mismo
modo, en P.
urnaefolia, la misma variable fue la más relevante (89,6% de contribución y 96,8% de importancia por
permutación) (Tabla 9). En P. pohlii, las variables estacionalidad de la
temperatura (39,7%) y temperatura máxima del mes más cálido (31,5%) dominaron
el modelo, mientras que la estacionalidad de las precipitaciones tuvo la mayor
importancia por permutación (47,5%). En P. transversalis, la variable con
mayor peso fue la isotermalidad con 93,1% de contribución y 87% de importancia por permutación (Tabla 8 y 9).
En P. tricuspis se presentó una combinación de variables hídricas
y térmicas, siendo
la precipitación del
trimestre más húmedo la más influyente (41% de contribución), seguida por
temperatura del mes más seco y precipitación del mes más seco (Tabla 8 y 9). Mientras, P. misera mostró
una fuerte respuesta al rango diurno me-dio (44) y variables como
precipitaciones del trimestre más seco (15%) y precipitaciones del mes más seco
(11,9%). Finalmente, P. capsularis se vio influenciada mayoritariamente
por la precipitación del trimestre
más seco (36,1%)
y la precipitación del
trimestre más húmedo (20%), seguidas de variables térmicas como estacionalidad
de a temperatura (15,2%) y rango diurno medio (10,1%).
Distribución espacial y patrones de riqueza
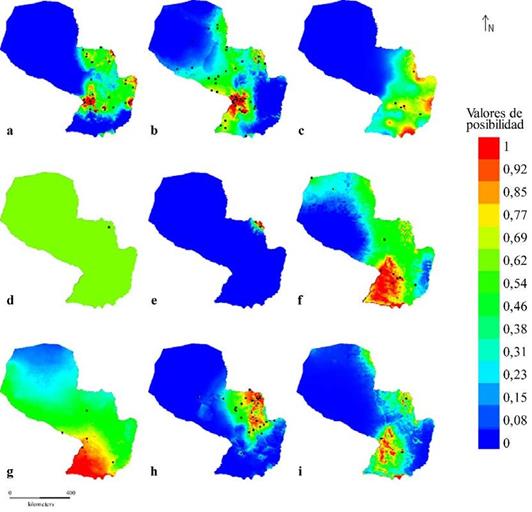
Las especies del subgénero Decaloba presentaron
modelos con distribución más restringida, generalmente concentrados en
ecorregiones húmedas de la Región Oriental (Figuras 6a-i). Esta predicción de
distribución puede estar asociada a requerimientos climáticos más específicos y a una menor capacidad de dispersión de las especies, aspectos
que se reflejan en los patrones espaciales y en la influencia de las variables
ambientales analizadas.
Los modelos generados para las
nueve especies del subgénero Decaloba revelaron patrones espaciales
diversos (Figuras 6a-i). El 89% de las
especies se distribuyen potencialmente en las
ecorregiones del Bosque Atlántico del Alto Paraná, Cerrado (55,56%), Pastizales
de la Mesopotamia (55,56%), Chaco Húmedo (44,44%), y en menor proporción en el
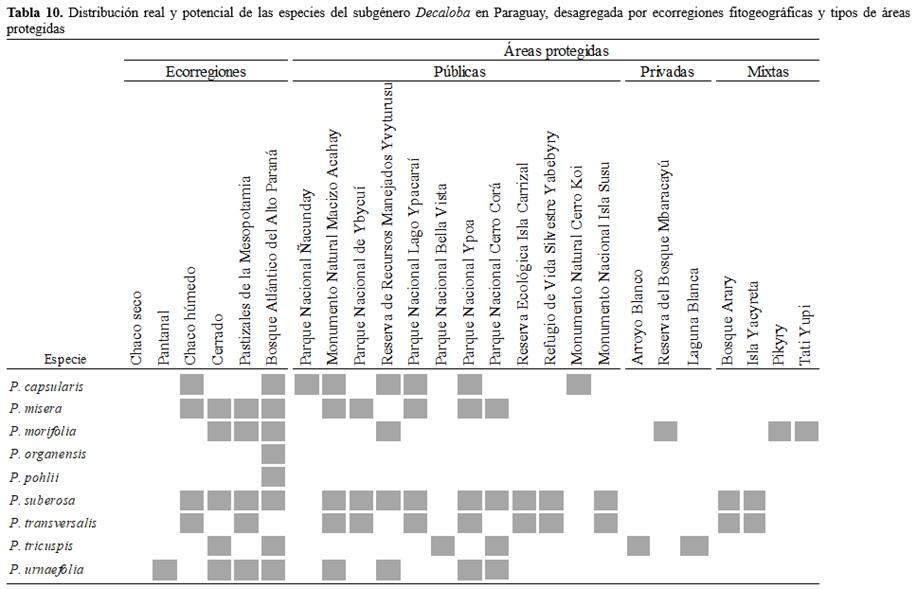
Pantanal (11,11%). El 78% de las especies del subgénero Decaloba,
presentan distribución potencial dentro de áreas protegidas públicas, 33% en
áreas privadas y 22% en áreas mixtas (Tabla 10).
Las especies con mayor amplitud
geográfica, como P. capsularis, P. misera y P. suberosa, presentaron distribuciones amplias y
continuas en la Región Oriental y
partes del Chaco, que sugieren mayor tolerancia ecológica y adaptación a ambientes perturbados (Figuras 6a-b, f).
Estas especies muestran alta idoneidad en mosaicos de ecorregiones, incluyendo zonas
antropogénicas como bordes de cultivos, pastizales secundarios y bordes de
bosques remanentes. En contraste, especies como P. organensis, P.
pohlii y P. urnaefolia, mostraron distribuciones mucho más
restringidas, con núcleos
de alta probabilidad localizados
principalmente en ambientes húmedos del Bosque Atlántico y zonas de transición
con el Cerrado (Figuras 6d-e, i). En P.
pohlii el área potencial de distribución es estrecha y se encontraría en el
noreste de Amambay, en concordancia
con el carácter de especie rara o infrecuente (Figura 6e).
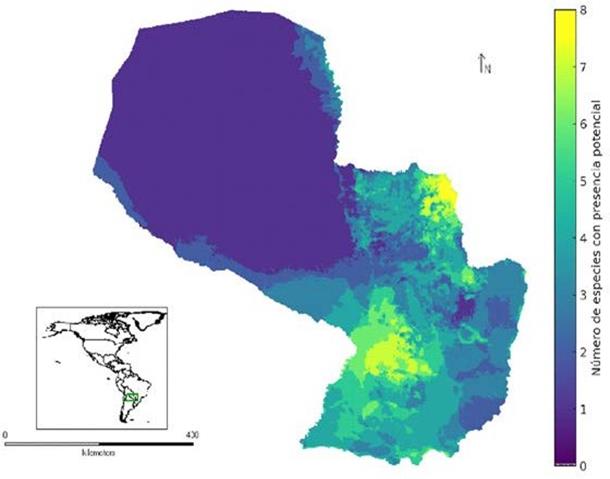
Las zonas de alta coincidencia
de modelos, con hasta cinco
especies en coexistencia espacial se ubican potencialmente en áreas de Alto Paraná, Caazapá, y noreste de Guairá
(Figura 7). Las áreas con seis o más especies en coexistencia se localizan en
el centro-noreste de Amambay, noreste de Canindeyú, sur de Cordillera, norte de Paraguarí, suroeste de Caaguazú y
centro-noroeste de Guairá (Figura 7). También se identificaron focos de riqueza
intermedia en sectores
del Cerrado, y en el Bosque
Atlántico particularmente al suroeste de San Pedro y centro-norte de Caaguazú (Figura
7). El subgénero Decaloba muestra una distribución potencial más concentrada en la Región Oriental,
con menor penetración hacia el Chaco y una dependencia más fuerte de condiciones húmedas y estacionales (Figuras 6a-i, 7).
Zonas
prioritarias de conservación para el género Passiflora
El análisis
de riqueza específica permitió de-limitar
siete regiones prioritarias para la conservación de especies nativas
de Passiflora en
Paraguay, considerando su alta diversidad, presencia de especies de distribución restringida y baja representación en el sistema nacional
de áreas protegidas (Figuras 5 y 7).
En el subgénero Passiflora,
se identificaron cuatro regiones prioritarias:
Bosque Atlántico del Alto Paraná (Canindeyú, Alto
Paraná, Caazapá e Itapúa): alta coincidencia
de P. alata, P. amethystina, P.
caerulea y P. edulis.
Centro-sur de Caazapá: núcleo destacado
de riqueza potencial con especies como P. amethystina, P. giberti y P.
edulis.
Chaco húmedo (oeste de Presidente Hayes y norte de Ñeembucú): presencia
de P. cincinnata, P. foetida, P. mooreana y P. palmatisecta.
Zona de transición Chaco seco–Chaco húmedo (sur de Boquerón
y noroeste de Presidente
Hayes): incluye especies poco conocidas como P. mooreana
y P. palmatisecta.
En
el subgénero Decaloba, se identificaron tres zonas prioritarias:
Bosque Atlántico del Alto Paraná (Alto Paraná,
Caazapá y Canindeyú): mayor diversidad del subgénero, incluyendo
especies poco registradas como P. pohlii.
Centro-norte de Caaguazú y noreste
de Guairá: riqueza
intermedia y baja representación
en áreas protegidas.
Zona de transición Cerrado–Bosque
Atlántico y Chaco
húmedo–Pastizales de la Mesopotamia: presencia potencial
de especies con afinidad
térmica y estacional como P. tricuspis y P. transversalis
DISCUSIÓN
Los modelos de distribución
potencial generados para las especies nativas del género Passiflora en
Paraguay revelan patrones espaciales coherentes con la diversidad ambiental del país y
evidencian una marcada influencia de las condiciones climáticas sobre la
idoneidad del hábitat. Basados principalmente en registros de herbario,
una fuente clave para estudios
de distribución potencial (Villaseñor y Téllez-Valdés, 2004), estos modelos
permiten estimar áreas de ocurrencia incluso en contextos de información
fragmentaria. Algunas especies como P. lepidota, P. morifolia y P.
pohlii tuvieron pocos registros, por lo
que sus predicciones deben considerarse preliminares. Esta baja representatividad puede atribuirse a múltiples factores: en ciertos casos, como en
P. lepidota y P. pohlii, las poblaciones se localizan en zonas de
difícil acceso como la Cordillera de
Amambay, donde las condiciones de seguridad
limitan las exploraciones científicas. Además, existe una tendencia histórica a realizar colectas en áreas más accesibles, lo que ha generado
vacíos de información en regiones remotas o con restricciones logísticas (Mateo
et al., 2011). Estos
vacíos no necesariamente reflejan rareza biológica, sino una baja intensidad de
muestreo en determinados sectores del país.
A pesar de estas limitaciones, los modelos resultan especialmente útiles para
identificar posibles áreas con vacíos de información o regiones poco exploradas,
permitiendo optimizar recursos y reducir la subjetividad en la planificación de
campañas botánicas (Seoane y Bustamante, 2001;
Gil y Lobo, 2012) y colecta de germoplasma
(Ocampo et al., 2007; Savino et al., 2014; Gutiérrez, 2015;
Aguirre-Morales et al., 2016). En particular, zonas como el centro-norte de Caaguazú,
noreste de Guairá, noreste de Canindeyú, centro-noreste de Amambay y suroeste
de San Pedro, que presentan alta idoneidad ecológica pero escasa documentación,
ameritan mayor esfuerzo de exploración y colecta sistemática.
En cuanto a los patrones
ecológicos, se observaron diferencias claras entre los subgéneros Passiflora y
Decaloba. Las especies
de Passiflora presentan una mayor amplitud
ecológica, ocupando tanto la Región Oriental como el Chaco, lo
que refleja un rango adaptativo más amplio. En contraste, las especies de Decaloba
exhiben una distribución más restringida, limitada principal-mente a
ambientes húmedos del oriente del país. Asimismo, tienden
a presentar nichos
ecológicos más estrechos y una mayor sensibilidad a las variables
térmicas, lo que sugiere requerimientos ambientales más específicos y una menor
capacidad de dispersión.
Desde una perspectiva
biogeográfica, las especies de Passiflora muestran afinidades claras por ciertas
ecorregiones. El Bosque
Atlántico del Alto Paraná, los
Pastizales de la Mesopotamia y el Cerrado albergan la mayor riqueza específica
del subgénero Decaloba, mientras que el Chaco húmedo y el Bosque
Atlántico del Alto Paraná son particularmente relevantes para especies del
subgénero Passiflora. La presencia de especies exclusivas del Bosque Atlántico,
como P. pohlii y P. palmatisecta, en zonas del Chaco seco subraya la necesidad de conservar tanto ambientes de alta
diversidad como hábitats
especializados (Dinerstein et
al., 2017).
Si bien la mayoría de las
especies muestran distribución potencial dentro
de áreas protegidas públicas, se identificaron vacíos de conservación relativos en el sistema
de conservación privada
y mixta de Paraguay.
Estos vacíos se reflejan en la
baja representatividad de ciertas especies en reservas privadas o mixtas, a
pesar de que sus modelos indican alta idoneidad ecológica en dichas zonas. Esta situación puede
deberse a la limitada
extensión, menor número y distribución geográfica de las áreas privadas y
mixtas en comparación con las públicas, así como a la falta de mecanismos efectivos para integrar estas categorías en estrategias nacionales de
conservación.
Por lo tanto, se recomienda ampliar
las estrategias de protección
hacia dominios menos re-presentados, promoviendo la creación de nuevas reservas
privadas, fortalecimiento de iniciativas comunitarias y establecimiento de
corredores ecológicos que conecten fragmentos de hábitat en paisajes productivos.
Estas acciones permitirían mejorar la cobertura del sistema de conservación y
asegurar la protección de especies con distribución restringida o baja
representatividad actual.
La comparación entre la
distribución real y potencial mostró que algunas especies, como P. capsularis,
P. foetida, P. misera y P. tricuspis, podrían estar
experimentando una reducción de su hábitat. Si bien han demostrado cierta capacidad
para prosperar en ambientes antropogénicos, su permanencia podría depender de
prácticas humanas específicas, como el mantenimiento de bordes de cultivo, cercas
vivas o remanentes de vegetación secundaria, lo que incrementa la compleja
relación entre biodiversidad y usos del suelo (Chazdon, 2003; Fischer y
Lindenmayer, 2006; Harvey et al., 2008; Perfecto y Vandermeer, 2010).
La mayoría de las especies
modeladas, excepto P. pohlii
y P. organensis, presentan distribución
potencial dentro del sistema nacional de áreas protegidas. Sin embargo, los
registros de herbario dentro de estas áreas son escasos
(Pereira Sühsner et
al., 2022), y los modelos
generados con menos de cinco registros
tienden a ajustarse estrechamente a las condiciones
ambientales conocidas, lo que puede inflar artificialmente el valor del AUC (Hernández et al., 2006; Wisz
et al., 2008). Aunque estos valores deben interpretarse con cautela, los
modelos siguen siendo útiles como herramientas exploratorias para identificar áreas potenciales de
ocurrencia y orientar futuras campañas de colecta. La implementación
de estudios poblacionales y ecológicos que permitan establecer el grado de
amenaza y orientar estrategias de conservación debería ser prioritaria a corto plazo.
Las zonas prioritarias para la conservación de Passiflora se distribuyen en varias ecorregiones del país. Regiones como el Bosque
Atlántico del Alto Paraná, centro-sur
de Caazapá, Chaco húmedo y la zona de transición entre el Chaco seco
y húmedo presentan alta idoneidad ecológica, presencia de especies de
distribución restringida y escasa representación dentro del sistema
nacional de áreas protegidas. El diseño de estrategias y políticas
públicas de conservación debería considerar
estas áreas como prioritarias para la conservación in situ y recolección de germoplasma.
Las siete regiones prioritarias
identificadas mediante el análisis
de riqueza específica reflejan condiciones ecológicas favorables y baja cobertura
institucional. Estas zonas albergan especies con sensibilidad ambiental elevada
o escasa documentación botánica, lo que las convierte en focos
estratégicos para acciones de conservación.
En el Bosque Atlántico del Alto
Paraná, se recomienda fortalecer las áreas protegidas existentes, dada la alta
presión por deforestación y la coincidencia de múltiples especies
de interés económico y
ecológico. En el centro-sur de Caazapá y centro-norte de Caaguazú, se sugiere
promover la creación de reservas
privadas, corredores
ecológicos y estrategias comunitarias de conservación. Las regiones del Chaco
húmedo y la zona de transición con el Chaco seco requieren estudios poblacionales y ecológicos,
así como exploraciones dirigidas para evaluar el estado de las poblaciones naturales.
Por su parte, las zonas de
transición entre ecorregiones, como el Cerrado y Pastizales de la Mesopotamia, presentan condiciones
particulares para especies con requerimientos ecológicos específicos. En estos
casos, se recomienda implementar campañas botánicas sistemáticas y diseñar
estrategias diferenciadas de conservación, tanto in situ como ex situ.
A pesar de las limitaciones
inherentes a los modelos basados únicamente en registros de presencia,
como el sesgo por esfuerzo de colecta (Reddy y Dávalos, 2003) y el uso
exclusivo de variables climáticas (Guisan y Thuiller, 2005), las áreas de
distribución potencial y los patrones de riqueza específica constituyen una base sólida
para guiar futuras acciones de conservación, exploración y monitoreo.
Finalmente, se recomienda
priorizar áreas con alta idoneidad ambiental y baja representación en el
sistema actual de conservación, así como incorporar nuevas variables ambientales
como cobertura del suelo, conectividad ecológica y escenarios de cambio climático
en investigaciones futuras (Araújo
y Peterson, 2012; Tamina
y Cuentas, 2015). Estudios recientes han demostrado que la
proyección de escenarios futuros es esencial para garantizar la conservación a
largo plazo (Guacho Tene, 2024), una consideración de particular importancia para las especies de Passiflora en
Paraguay. De cara al futuro,
será crucial integrar estos elementos para refinar los modelos
predictivos y fortalecer los procesos de toma de decisiones orientadas a la conservación de la biodiversidad en el país.
CONCLUSIONES
Los modelos generados
permitieron estimar la distribución potencial de 22 especies nativas del género
Passiflora en Paraguay, con alta resolución ecológica y sólida
capacidad predictiva, incluso
en contextos de registros fragmentarios. Esta aproximación constituye una
herramienta estratégica para orientar acciones de conservación, exploración y
gestión de germoplasma, especialmente en regiones poco documentadas.
El análisis comparativo entre los subgéneros Passiflora y Decaloba
evidenció diferencias marcadas en sus patrones de distribución y sensibilidad
ambiental. Mientras Passiflora mostró mayor amplitud ecológica y
capacidad de ocupación en diversos ambientes, Decaloba presentó nichos
más estrechos y mayor sensibilidad a variables
térmicas, lo que sugiere requerimientos ecológicos más específicos
y una menor capacidad de dispersión. Estas diferencias resaltan la necesidad de diseñar estrategias diferenciadas de
conservación y colecta, ajustadas a la ecología particular de cada grupo.
Asimismo, se identificaron áreas
de alta idoneidad ecológica con baja densidad de registros, como el
centro-norte de Caaguazú, noreste de Guairá, noreste de Canindeyú,
centro-noreste de Amambay y suroeste de San Pedro. Estas zonas representan prioridades para futuras campañas
de colecta botánica y exploración sistemática. Los modelos generados también ofrecen herramientas
clave para reforzar el sistema actual de áreas protegidas y planificar nuevas
estrategias de conservación territorial, replicables
para otros grupos vegetales de interés estratégico.
AGRADECIMIENTOS
Este estudio se llevó a cabo
como parte de los requisitos para la obtención del título de doctorado
en Ciencias Aplicadas en la Universidad Nacional de Misiones (Posadas, Argentina). Los autores agradecen
a los herbarios FACEN, FCQ, PY,
SCP, MNES, CTES,
SI, NYBG, G, MO, BCN, así como las plataformas GBIF y
PyBIO, por brindar acceso a sus colecciones y datos. El apoyo financiero fue proporcionado por la Agencia Nacional de Promoción Científica
y Tecno-lógica (PICT N.º 2016-1637; PICT 2017-4203; PICT2020 serie A 3783)
y la Universidad Nacional
de Misiones (PDTS 16Q1082).
APORTES DE LOS AUTORES
Pereira-Sühsner llevó a cabo la
investigación como parte de sus estudios doctorales bajo la dirección de Honfi
y codirección de Daviña. Pereira-Sühsner preparó el borrador original del
manuscrito. Daviña y Honfi supervisaron la investigación y brindaron orientación a lo largo
del proyecto. Todos los autores hicieron
contribuciones sustanciales a la revisión del manuscrito y aprobaron la
versión final para su presentación.
CONFLICTO DE
INTERÉS
Los autores declaran que no
existe ningún conflicto de intereses en relación con la investigación, la redacción y publicación de este manuscrito.
REFERENCIAS BIBLIOGRÁFICAS
Aguirre-Morales, A. C., Bonilla-Morales, M. M., & Caetano,
C. M. (2016). Evaluación de la diversidad y patrones de distribución
de Passiflora subgénero Astrophea (Passifloraceae)
en Colombia: Un reto para la investigación taxonómica, florística y de conservación de las especies. Acta
Agronómica, 65(4), 422–430. https://doi.org/10.15446/acag.v65n4.51444
Araújo, M. B.,
& Peterson, A. T. (2012). Uses and misuses of bioclimatic envelope modeling.
Ecology, 93(7), 1527–1539. https://doi. org/10.1890/11-1930.1
Baldwin, R. A. (2009).
Use of maximum entropy
modeling in wildlife research. Entropy, 11(4),
854–866. https://doi.org/10.3390/e11040854
Borges, K.F., Lorenzoni, R.M., Fontes, M.M. P.,
& Milward-de-Azevedo, M.A. (2020). A família Passifloraceae sensu
stricto do Espírito Santo, Brasil. Rodriguésia, 71,
e03212018. https://doi.org/10.1590/2175-7860202071084
Ceballos, G., Martínez, L.,
García, A., Espinoza, E., Bezaury Creel, J., & Dirzo, R. (Eds.). (2010). Diversidad,
amenazas y áreas prioritarias para la conservación de las selvas secas
del Pacífico de México. Fondo de Cultura
Económica, CONABIO, CONANP.
CEPAL. (2014). La
economía del cambio climático en el Paraguay (LC/W.617). Naciones Unidas. https://www.cepal.org/es/publicacio-nes/32506-la-economia-del-cambio-climati-co-en-el-paraguay
Chávez González, H., González
Guillén, M. de J., & Hernández de la Rosa, P. (2015). Metodologías para
identificar áreas prioritarias para conservación de ecosistemas naturales. Revista
Mexicana de Ciencias Forestales, 6(1), 8–23. Chazdon, R. L. (2003).
Tropical forest recovery: legacies of human impact and natural
disturbances. Perspectives in Plant Ecology, Evolu-tion and
Systematics, 6(1–2), 51 – 71. https://doi.org/10.1078/1433-8319-00042
Cruz-Cárdenas, G., Villaseñor, J. L., López-Mata, L., Martínez-Meyer, E. & Ortiz,
E. (2014). Selección de predictores ambientales para el modelado de la distribución de especies en MaxEnt.
Revista Chapingo Serie Ciencias Forestales y del Ambiente, 20(2),
187 – 200. https://doi.org/10.5154/r.rchscfa.2013.09.034
Dhawan, K., Dhawan, S., &
Sharma, A. (2004). Passiflora:
A review update. Journal of Ethnopharmacology, 94(1),
1 – 23. https://doi. org/10.1016/j.jep.2004.02.023
Dinerstein, E., Olson,
D., Joshi, A., Vynne, C., Burgess, N. D., Wikramanayake, E., ... &
Han-sen, M. (2017). An ecoregion-based approach to protecting half the
terrestrial realm. BioSci-ence,
67(6), 534 – 545. https://doi.org/10.1093/ biosci/bix014
Elith, J., & Leathwick, J. R.
(2009). Species distribution models: Ecological explanation and prediction
across space and time. Annual Re-view of Ecology, Evolution, and
Systematics, 40, 677–697. https://doi.org/10.1146/annurev. ecolsys.110308.120159
Feuillet, C., & MacDougal, J. M. (2004).
Check-list of recognized
species names of Passiflora L. (Passifloraceae). Contributions from the U.S. National Herbarium, 49, 1–xx.
Smithsonian Institution, Department of Botany.
Fischer, J.; Lindenmayer,
D. B. (2006). Landscape modification and habitat fragmentation: a synthesis. Global Ecology and
Biogeogra-phy, 15(3), 265 – 280. https://doi.org/10.1111/j.1466-8238.2007.00287
Gil, M. P., & Lobo, J. M. (2012). AUC: A mis leading measure of the performance of
predictive distribution models. Global Ecology and Biogeography, 21(2),
210 – 211. https://doi. org/10.1111/j.1466-8238.2011.00683.x
Global Biodiversity Information Facility
(GBIF). (2021). Portal de datos sobre biodiversidad. https://www.gbif.org/
Guacho Tene, A. J. (2024). Distribución actual y potencial de la especie
Passiflora ligularis en los
Andes Ecuador, bajo escenarios de cambio climático [Tesis de grado, Escuela
Superior Politécnica de Chimborazo].
Guisan, A., & Thuiller,
W. (2005). Predicting
species distribution: Offering more than simple habitat models. Ecology Letters, 8(9),
993 – 1009. https://doi.org/10.1111/j.1461-0248.2005.00792.x
Gutiérrez, B. (2015). Consideraciones para el
muestreo y colecta de germoplasma en la conservación ex situ de recursos genéticos forestales. Conservación de Recursos Genéticos Forestales, Principios y
Prácticas. Santiago, Chile. Instituto Forestal.
Harvey, C. A., Komar, O., Chazdon,
R. L., Ferguson, B. G.,
Finegan, B., Griffith, D. M., Martínez-Ramos, M., Morales, H., Nigh, R.,
Soto-Pinto, L., van Breugel, M., & Wishnie, M. (2008).
Integrating Agricultural Landsca-pes with Biodiversity Conservation in the Mesoamerican
Hotspot. Conservation Biology, 22(1), 8 – 15. https://doi.org/10.1111/j.1523-1739.2007.00863.x
Hernández, P. A., Graham, C. H., Master, L. L., &
Albert, D. L. (2006). The effect of sample size and species characteristics on performance of
different species distribution modeling methods. Ecography, 29(5),
773 – 785.
Hijmans, R. J., Guarino,
L., & Mathur,
P. (2012). DIVA-GIS
[Computer software]. University
of California. http://www.diva-gis.org
Killip, E. P. (1938). The American species of Passifloraceae. Publications of the Field Museum
of Natural History, Botanical Series, 19(1), 1 – 613. https://doi.org/10.5962/bhl.title.2523
MADES. 2025. Plan
Estratégico del Sistema Nacional de Áreas Silvestres Protegidas de Paraguay
SINASIP 2025 - 2030. Asunción, Paraguay. 65p. https://fapi.org.py/wp-content/ uploads/2025/04/Sinasip-Version-Resolucion. pdf
Mateo, R. G., Felicísimo,
Á. M., & Muñoz, J. (2011). Modelos de distribución de especies: una revisión
sintética. Revista Chilena
de His-toria Natural, 84(2),
217 – 240. https://doi. org/10.4067/S0716-078X2011000200008
Mezaour, M. (2005). Méthodes statistiques pour l’évaluation de la performance des modèles de
distribution d’espèces [Tesis
de maestría, Université de Montréal].
Milward-de-Azevedo,
M. A., de Oliveira, F. C., & Cervi, A. C. (2018).
Distribution patterns of Passiflora L.
(Passifloraceae s.s.) in the Serra da Mantiqueira, Southeast Brazil. Brazilian
Journal of Botany, 41(3), 641 – 650. https:// doi.org/10.1007/s40415-018-0469-2
Ocampo, J.,
Coppens d’Eeckenbrugge, G., & Jarvis, A. (2010). Distribution of the Genus Passiflora L. Diversity in Colombia
and Its Potential as an Indicator for Biodiversity Management in the Coffee
Growing Zone. Diversity, 2, 1158 – 1180.
Ocampo, J.,
Coppens d’Eeckenbrugge, G., Res-trepo, M., Jarvis, A., Salazar,
M., & Caetano, C. (2007)
Diversity of Colombian Passifloraceae: Biogeography and an updated list for
conservation. Biota Colombiana, 8, 1 – 45.
Pennington, R. T., Lavin, M., & Oliveira-Filho, A.
T. (2005). Tropical
mountain cradles of dry
forest diversity. Proceedings of the National Academy of Sciences of the
United States of America 102(13), 4913 – 4918. https://doi. org/10.1073/pnas.0505013102
Pereira Sühsner,
C., Daviña, J. R., &
Honfi, A. I. (2022). Passiflora L. de Paraguay: morfología, fenología, ecología y
distribución. Rojasiana, 20(1), 19 – 87.
Perfecto, I., & Vandermeer, J. (2010). The agroecological matrix as alternative to the land-spa-ring/agriculture intensification model. Proceedings
of the National Academy of Sciences, 107(13), 5786 – 5791. https://doi.org/10.1073/ pnas.0905455107
Phillips, S. J., Anderson,
R. P., & Schapire, R. E. (2006).
Maximum entropy modeling of species geographic distributions. Ecological Modelling,
190(3–4), 231 – 259. https://doi. org/10.1016/j.ecolmodel.2005.03.026
Popak, A. E., & Markwith, S. H. (2019). Economic
valuation of bee pollination services for passion fruit (Malpighiales:
Passifloraceae) cultivation on smallholding farms in São Paulo, Brazil, using
the avoided cost method. Journal of Economic Entomology, 112(5),
2049 – 2054. https://doi.org/10.1093/jee/toz169
PyBIO. (2021). Passiflora.
PyBIO. https://www.pybio.org/en/index.php?s=Passiflora
QGIS Development Team. (2025). QGIS Geographic
Information System (Versión 3.40) [Computer software]. https://qgis.org/
Reddy, S., & Dávalos,
L. M. (2003). Geographical
sampling bias and its implications for conservation priorities in Africa. Journal
of Biogeography, 30(11), 1719 – 1727. https://doi. org/10.1046/j.1365-2699.2003.00946.x
Savino, C., Diodato, L., Gatto, M. A., & Zerda, H. R. (2014). Modelos de
Distribución Potencial de Especies. UNSE, 1, 30 – 36.
Scheldeman, X.,
Willemen, L., Coppens d’Eec-kenbrugge, G., Romeijn-Peeters, E., Restrepo, M. T., Romero Motoche, J., Jiménez, D.,
Lobo, M., Medina, C. I., Reyes, C., Rodríguez,
D., Ocampo, J. A., Van Damme, P.,
& Goetghebeur, P. (2007). Distribution, diversity and environmental
adaptation of highland papaya (Vasconcellea spp.) in tropical and
subtropical. America. Biodiversity and Conservation, 16(6), 1867
– 1884. https://doi.org/10.1007/ s10531-006-9086-x
Segura, S., Coppens d’Eeckenbrugge, G., López, L., Grum,
M., & Guarino,
L. (2003). Mapping the potential distribution of five species
of Passiflora in
Andean countries. Genetic Resources and Crop Evolution, 50(6),
555 – 566. https://doi.org/10.1023/A:1024424012134
Seoane, J., &
Bustamante, J. (2001). Predictive habitat distribution models: A tool for integrating
ecology and conservation. Biological Conservation, 98(3), 333 –
343. https://doi. org/10.1016/S0006-3207(00)00168-4
Tamina, A., & Cuentas, D. (2015). Biogeografía
predictiva: Técnicas de modelamiento de distribución de especies y su aplicación en el impacto
del cambio climático. Revista de Ciencias Ambientales UNALM, 49(2),
91 – 109.
Thiers, B. (2021). Index
Herbariorum: A global directory of public
herbaria and associated staff. New York Botanical Garden’s Virtual Herbarium. https://sweetgum.nybg.org/science/ih/
Ulmer, T., & MacDougal, J. M. (2004).
Passiflora: Passionflowers of the world. Timber Press.
Villaseñor, J. L., & Téllez-Valdés, O. (2004).
Distribución potencial de las especies del género Jefea (Asteraceae)
en México. Boletín de la
Sociedad Botánica de México, 74, 97 – 106.
Wisz, M. S., Hijmans, R. J., Li,
J., Peterson, A. T., Graham, C. H., Guisan, A., & NCEAS Predicting Species
Distributions Working Group. (2008). Effects of sample size on the perfor-mance of species distribution models. Diversity
and Distributions, 14(5), 763 – 773. https://doi.org/10.1111/j.1472-4642.2008.00482.x
WorldClim. (2021). Bioclimatic
variables — WorldClim 1 documentation. https://www. worldclim.org/data/bioclim.html
Zhang, J., Tao,
S., Hou, G., Zhao, F., Meng, Q., & Tan, S. (2023). Phytochemistry,
nutritional composition, health benefits and future prospects of Passiflora:
A review. Food Chemistry, 428, 136825.
https://doi.org/10.1016/j.foo-dchem.2023.136825