Introducción
La familia Orchidaceae representa uno de los
grupos botánicos más diversos, con más de 28.000 especies que destacan por su
complejidad morfológica y estrategias reproductivas particulares (Li et al.,
2024). Las orquídeas han desarrollado mecanismos sofisticados de interacción
biológica con hongos simbiontes como los pertenecientes a las familias
Tulasnellaceae y Ceratobasidiaceae, favoreciendo la germinación y el
establecimiento de sus plántulas (Hartvig et al., 2024). Además, presentan
estructuras florales adaptadas para atraer polinizadores específicos mediante
la producción de néctar, fragancias y señales visuales (Cardoso et al., 2024).
Igualmente, su capacidad de adaptación a parámetros físicos como la incidencia
solar ha facilitado su propagación tanto en ambientes naturales como en
aquellos antropizados (Aini et al., 2022).
México alberga aproximadamente 1.260
especies de orquídeas agrupadas en 170 géneros, distribuidos en hábitat
ecológicamente relevantes como las áreas naturales protegidas y espacios de
valor cultural como el sitio arqueológico El Tajín en Papantla, Veracruz
(Alanís-Méndez et al., 2023). Dentro de la amplia diversidad de orquídeas, el
género Laelia destaca por su representatividad en zonas montañosas,
especialmente con especies incluidas en el grupo de las Laelias mexicanas
de montaña (Olivares-Juárez et al., 2022). Pero a pesar de su riqueza
florística, más de 180 especies de orquídeas mexicanas enfrentan distintos
niveles de amenaza, según la NOM-059-SEMARNAT-2010 (Secretaría de Medio
Ambiente y Recursos Naturales, 2010). Estas amenazas se incrementan
especialmente en épocas de festividades, donde especies como Laelia anceps
Lindl. se emplean de forma ornamental debido a la vistosidad de sus flores
(Muñoz-Hernández et al., 2020). Por ello, el uso cultural intensivo ejerce
presión sobre sus poblaciones silvestres, comprometiendo su regeneración
natural y reduciendo la disponibilidad de individuos reproductivamente viables
en sus hábitats originales, con implicaciones ecológicas y patrimoniales
importantes.
La orquídea Laelia
anceps Lindl. se distribuye ampliamente en regiones del
Golfo de México, Sierra Madre Oriental y parte de Centroamérica, con dos
subespecies reconocidas: L. anceps
subsp. anceps y L.
anceps subsp. dawsonii
(Hernández-García et al., 2021). Esta orquídea
epífita cumple doble función ya que es altamente valorada en la horticultura
internacional como especie ornamental y representa un componente esencial en
los bosques de encino donde habita de forma silvestre (Tejeda-Sartorius et al.,
2022). No obstante, el conocimiento sobre sus interacciones ecológicas, especialmente
su biología reproductiva en ambientes naturales y los agentes polinizadores
involucrados, sigue siendo limitado. A diferencia de otras regiones
neotropicales como en Sudamérica, donde se han documentado mecanismos
reproductivos como la polinización en géneros como Catasetum
(Krahl et al., 2024).
La reproducción de orquídeas puede estar
influenciada por factores abióticos como la luz, temperatura, humedad,
ventilación y disponibilidad de nutrientes, afectando tanto la germinación de
semillas como el crecimiento vegetativo y la floración (Baldelomar et al.,
2019). Anteriormente, en estudios in vitro sobre Laelia anceps,
se ha establecido un protocolo de embriogénesis somática que utiliza
combinaciones hormonales de ANA, BAP y AIA, logrando una regeneración eficiente
de embriones somáticos bajo condiciones de fotoperiodo controlado, con tasas de
supervivencia superiores al 90 % tras
la aclimatación en invernadero (Lee Espinosa
et al., 2008). En contraste, el estudio ex situ de condiciones como la
radiación solar asociada a la ubicación en el hospedero aún no ha sido abordado
en Laelia anceps, lo que representa una oportunidad para profundizar en
su ecología reproductiva.
Otro vacío del conocimiento científico lo
representa la polinización ex situ de Laelia anceps. A diferencia
de otros estudios en ecosistemas costeros como los manglares de Veracruz, donde
se ha documentado que especies de orquídeas como Myrmecophila grandiflora
y Brassavola nodosa son polinizadas principalmente por la abeja
carpintera Xylocopa nautlana y se subraya la importancia de conservar
las condiciones micro climáticas y florales de los hábitats y polinizadores
(Alanís-Méndez et al., 2019). También en México se han estudiado los síndromes
florales en la familia Orchidaceae, revelando que la interacción
químico-morfológica entre aroma, forma y color de las flores es clave para
atraer abejas del género Centris, así como especies Euglossa y Eulaema
(Téllez-Velasco & Tejeda-Sartorius, 2013). La investigación anterior
concluyó que dichas interacciones resultan esenciales para comprender la
dinámica reproductiva en orquídeas epífitas y terrestres. De manera específica
para Laelia anceps, se han realizado esfuerzos de conservación a través
del diseño de jardines ecológicos que buscan atraer polinizadores
(Tejeda-Sartorius, 2023). La investigación resaltó que no se han confirmado
polinizadores específicos, pero se ha reportado la visita de abejas y mariposas
que podrían haber favorecido su floración en ciclos reproductivos. De hecho,
otra investigación ha recopilado información de visitantes florales como abejas
sin aguijón del género Trigona, moscas, escarabajos florícolas y
mariposas, evidenciando que la diversidad taxonómica de polinizadores
contribuye significativamente a los mecanismos reproductivos en orquídeas
silvestres (Cervantes-Llamas et al., 2018). Esta complejidad ecológica ha sido
destacada en diversos estudios sobre amenazas y conservación en Orchidaceae,
donde se enfatiza el papel de la polinización especializada en la resiliencia
ecológica. Donde casos de mimetismo floral y coevolución con polinizadores
sugieren una interdependencia delicada, en la cual la pérdida de un agente
polinizador puede implicar riesgos directos para la supervivencia (Álvarez et
al., 2023).
El presente trabajo tiene como objetivo
evaluar la influencia de los parámetros ecológicos sobre la reproducción de Laelia
anceps subsp. anceps. La metodología incluyó el análisis de su
estructura poblacional, fenología floral, visitantes florales y polinizadores
en condiciones naturales. Para ello, se evaluaron parámetros abióticos como la
iluminación en el entorno de sus forofitos, considerando dosel abierto y cerrado
como variables que pueden influir tanto en la fisiología de la especie como en
la actividad de los polinizadores. Los datos obtenidos tienen como finalidad
contribuir en el conocimiento de la dinámica ecológica de esta orquídea y
generar información técnica para la conservación de sus poblaciones silvestres.
Materiales y Métodos
Características del área de estudio
La Figura 1 muestra la ubicación geográfica del
sitio de estudio (a) y la distribución espacial de las flores (b) de Laelia
anceps subsp. anceps estudiadas. El sitio se ubica en la localidad
de Naolinco de Victoria, correspondiente a la región montañosa central del
estado de Veracruz, México, en un entorno fisiográficamente perteneciente a la
Sierra de Chiconquiaco. El sitio se ubica entre una altitud de 600 a 1.920
m.s.n.m. con un clima predominante semicálido húmedo con lluvias durante el
verano y una temperatura media anual de 16 °C
(Instituto Nacional de Estadística y Geografía,
2010). Las características climáticas y
ecológicas
del sitio sustentan su elección como área de
estudio para evaluar las interacciones entre factores ambientales, morfología
floral y presencia de polinizadores. Previamente se realizó una visita del
sitio para aplicar un censo poblacional de la especie para seleccionar los
individuos que cumplieron con el criterio de contar con al menos una
inflorescencia.
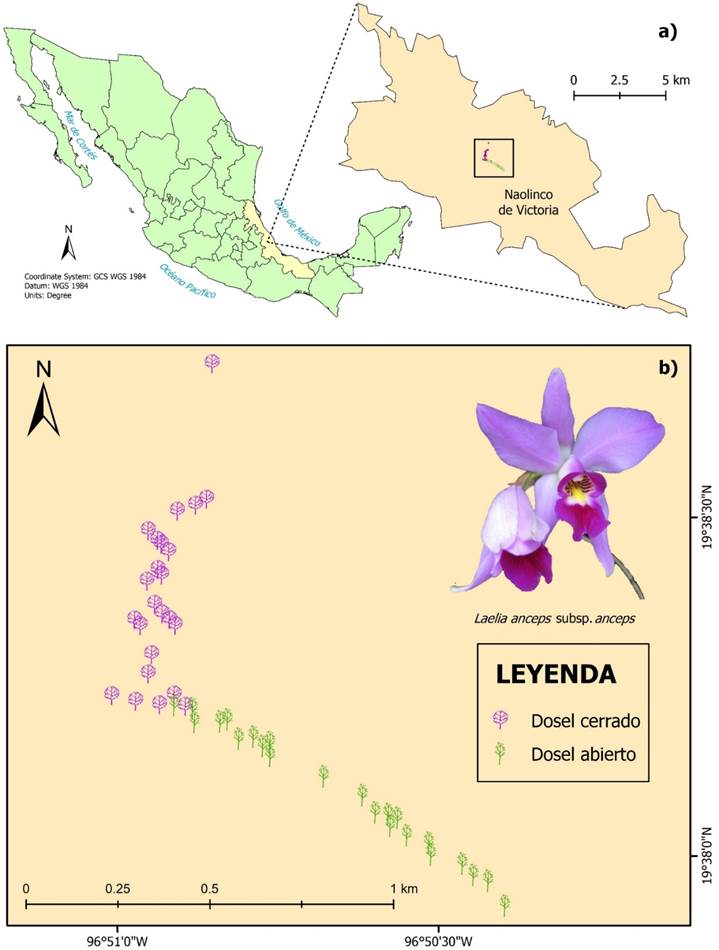
Figura 1. Ubicación del sitio de
estudio (a) y distribución espacial de las flores de Laelia anceps (b). Fuente:
Autoría propia.
Evaluación de las condiciones ecológicas de Laelia
anceps subsp. anceps
La
Tabla 1 muestra una comparativa de las condiciones de dosel
considerados en el estudio de Laelia anceps subsp. anceps. Se
realizó una comparación entre dos tipos de dosel arbóreo: cerrado y abierto. La
diferenciación se fundamentó en la disponibilidad lumínica como parámetro
ambiental clave, donde las plantas ubicadas en el dosel cerrado presentaron una
menor exposición a la radiación solar directa, en contraste con aquellas del dosel
abierto, con una mayor incidencia lumínica. La diferencia relativa en la
intensidad de incidencia lumínica entre doseles fue del 13,7 veces.
Adicionalmente, se realizó la georreferenciación individual de cada forofito
mediante un receptor GPS modelo GARMIN eTrex® 10. Con este procedimiento se
contabilizaron 15 forofitos con 36 individuos en el dosel cerrado y 26
forofitos con 38 individuos en el dosel abierto.
Tabla 1. Variables comparativas de las
dos condiciones ecológicas de Laelia anceps subsp. anceps.
|
Variables
|
Dosel cerrado
|
Dosel abierto
|
|
Característica del hábitat
|
Baja incidencia solar
|
Alta incidencia solar
|
|
Intensidad lumínica promedio
|
2.640 lm*
|
36.334 lm*
|
|
Número de forofitos identificados
|
15
|
26
|
|
Número de individuos observados
|
36
|
38
|
|
Número de flores evaluadas
|
24
|
22
|
|
*unidad
de medida en lúmenes.
|
Fuente: Autoría propia.
Descripción de la estructura
poblacional
La Tabla
2 muestra las variables consideradas y su relevancia para el estudio. Para la
descripción de la estructura poblacional de Laelia anceps subsp. anceps
fueron consideradas variables específicas que sirvieron para realizar
diferenciaciones entre los dos doseles evaluados.
Tabla 2.
Descripción de las variables clave en el estudio de Laelia anceps subsp.
anceps.
|
Variables
|
Relevancia
|
|
Especie de forofito
|
Determina las preferencias de sustrato epífito, bajo la
condición que algunos hospederos ofrecen mejor corteza, altura y humedad
superficial.
|
|
Número de forofitos por condición
|
Permite comparar la disponibilidad de hábitat de la especie
epífita por condición.
|
|
Número de individuos por forofito
|
Refleja el éxito de establecimiento poblacional por tipo de
condición lumínica.
|
|
Número de individuos por condición
|
Ayuda a inferir efectos de cambios micro climáticos sobre
las poblaciones epífitas.
|
|
Luminosidad
|
Influye directamente en la fenología y floración donde los
niveles bajos pueden limitar la producción de flores y atraer menos
polinizadores.
|
|
Vegetación acompañante
|
Reportar especies acompañantes que pueden intervenir en la
regulación de humedad, sombra o competencia por espacio.
|
|
Dimensiones de las flores
|
Permite determinar diferencias morfológicas
según la condición de luminosidad.
|
Fuente: Autoría propia.
Evaluación de la dinámica de floración
Para evaluar la dinámica de floración de Laelia
anceps subsp. anceps en condiciones de dosel abierto y cerrado, se
realizaron tres muestreos durante la temporada de floración, correspondientes a
las fechas 20 de septiembre, 6 de octubre y 30 de octubre. En cada muestreo, se
cuantificaron el número total de flores presentes en individuos localizados
bajo ambas condiciones de dosel, así como el número de plantas e
inflorescencias. La cuantificación se realizó mediante conteos directos durante
las visitas en campo y los datos fueron registrados por condición de dosel y
fecha, enfocados para la identificación de picos de floración y comparaciones
entre ambientes con distinta exposición a radiación solar.
Evaluación de la fenología floral
La
Figura 2 muestra una instantánea del procedimiento aplicado en la evaluación de
la fenología floral. Para la evaluación se consideraron exclusivamente aquellos
individuos dentro del área de estudio que presentaban al menos una
inflorescencia. Bajo este criterio, se identificaron un total de 46 flores,
distribuidas espacialmente según la cobertura del dosel: cerrado (n= 24) y
abierto (n= 22), como se presentó anteriormente en la Figura 1b. Posteriormente
los ejemplares fueron recolectados cuidadosamente y trasladados bajo resguardo
en bolsas de papel, con el fin de preservar su integridad morfológica para el
procesamiento de las muestras. Las mediciones se realizaron con un calibrador
(Vernier, con sensibilidad de 0,01 mm), considerando los siguientes parámetros
estructurales: ancho de la entrada del tubo que
conforma el labelo (AnL), altura del tubo que forma el labelo (AlL),
longitud desde la entrada del tubo hasta el fondo del labelo (Long1), longitud
de la columna floral (Long2), distancia desde la entrada del tubo hasta la
cavidad estigmática (Long3) y ancho de dicha cavidad (AnE).
Los resultados de las mediciones fueron reportados en milímetros (mm) como
unidad de medida. La evaluación de la fenología floral también incluyó
observaciones quincenales durante la temporada de floración entre los meses de
octubre y noviembre para abarcar el momento previo a la antesis y durante la
floración. Las variables registradas fueron el número de individuos por
forofito, número de inflorescencias por individuo, número de flores por
inflorescencia, número de flores por planta y número de frutos por individuo.
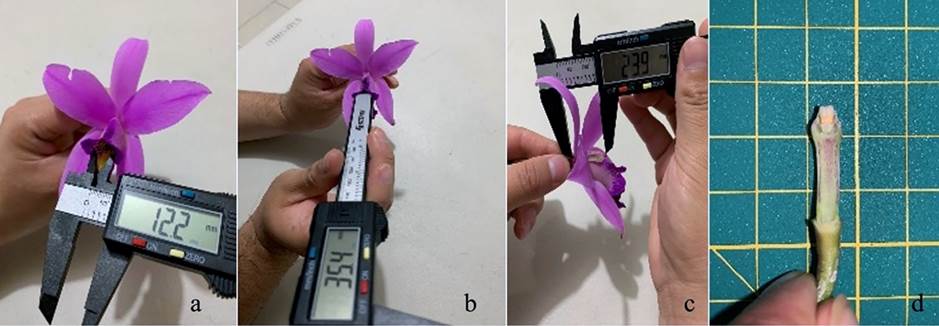
Figura
2.
Medición a flores seleccionadas. a) ancho de la entrada del tubo que conforma
el labelo (AnL), b) longitud desde la entrada del tubo hasta el fondo del
labelo (Long1), c) longitud de la columna floral (Long2), d) ancho de dicha
cavidad (AnE). Fuente: Autoría propia.
Análisis estadístico
Los datos obtenidos fueron sometidos a la prueba
de normalidad de Shapiro-Wilk con el objetivo de evaluar si los valores de
simetría y curtosis se ajustaban a una distribución normal. En función de los
resultados, se aplicaron pruebas estadísticas paramétricas (análisis de
varianza, ANOVA) o no paramétricas (Kruskal-Wallis) para identificar
diferencias significativas entre las variables evaluadas. Se consideraron
diferencias estadísticamente significativas cuando el valor de p fue
igual o menor a 0,05.
Identificación de visitantes florales y
polinizadores
El registro de los visitantes florales de Laelia
anceps subsp. anceps se
realizó de forma in situ durante diez días. Cada visitante fue
documentado mediante fotografías con una cámara Nikon D3100 y adicionalmente
colectado. La identificación de los visitantes florales se realizó con ayuda de
claves dicotómicas para cada uno de los grupos de insectos observados mediante
el uso de guía taxonómicas (Ticktin et al., 2023). El procedimiento típico
correspondió a observaciones que fueron focalizadas en los doseles (abierto y
cerrado) durante la floración principal (octubre a diciembre), con sesiones en
bloques diurnos y vespertinos comprendidos en los horarios desde 08:00 am hasta
18:00 pm. La sesión promedio de observación de una flor fue de 10 minutos,
registrando número de visitantes, tiempo de permanencia, comportamiento y
presencia de polinios. Los ejemplares visitantes fueron capturados con una red
y depositados en recipientes plásticos con alcohol al 70% para su posterior
transporte y clasificación taxonómica. El registro de visitantes florales se
llevó a cabo completamente al azar con al menos 10 flores por sitio, repetido
por tres semanas consecutivas.
Identificación de patrones guía en las flores
La identificación de patrones visuales fue
mediante la metodología basada en la exposición controlada a luz UV y el
registro fotográfico especializado. El procedimiento típico inició con la
selección de flores frescas en estado de antesis recolectadas en las dos
condiciones de dosel (abierto y cerrado). Las flores fueron colocadas en una
cámara oscura equipada con iluminación UV (365 nm) y se fotografiaron
utilizando una cámara digital Sony Alpha 7R IV con tipo de sensor CMOS
full-frame. El procedimiento aplicado sirvió para detectar patrones de
absorción y reflexión UV, como zonas hipo cromáticas o guías nectaríferas no
visibles para el ojo humano.
Resultados
Descripción de la estructura poblacional
La
Figura 3 presenta algunas de las especies epifitas presentes en los forofitos
(a-b) y una visual del forofito (c-d) de Laelia anceps subsp. anceps evaluados
en este estudio. En el dosel cerrado se registraron especies de la familia
Orchidaceae como Domingoa purpurea, Isochilus unilateralis, Lophiaris
straminea, Lycaste aromatica, Lycaste deppei y Prosthechea
cochleata, además de Rhipsalis baccifera de la familia Cactaceae y Tillandsia
tricolor y sp. de la familia Bromeliaceae. En el dosel abierto se
observaron especies similares como: Domingoa purpurea, Epidendrum
polyanthum, Isochilus unilateralis, Lycaste aromatica y Prosthechea
cochleata, junto con bromelias del género Tillandsia. Los ejemplares
observados de la figura 3c y 3d se registraron un total de 41 forofitos, los
cuales fueron identificados taxonómicamente como pertenecientes a la especie de
Quercus crassifolia.
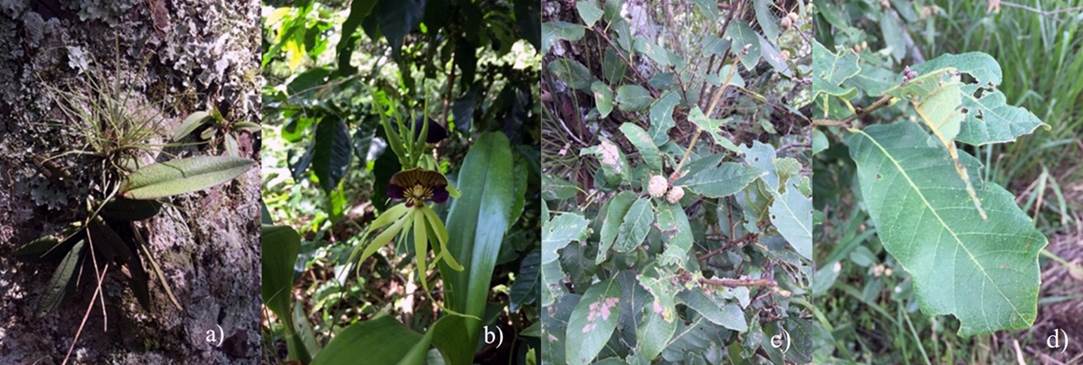
Figura
3.
Epífitas Domingoa purpurea (a) y Prosthechea cochleata (b).
Forofito Quercus crassifolia (c-d).Fuente: autoría propia.
Características poblacionales de la población de
estudio
La
Tabla 3 presenta el número de forofitos registrados en condiciones de dosel
abierto y cerrado, así como los promedios de plantas, flores y cápsulas por
forofito. Se contabilizaron 26 forofitos en dosel abierto y 15 en dosel
cerrado, evidenciando una distribución espacial no uniforme, con mayor
presencia de hospederos en áreas abiertas. Pero, el número de plantas presentes
por forofito fue superior por 1,7 veces en dosel cerrado en comparación con
dosel abierto, con diferencia estadísticamente significativa (p= 0,02),
lo que sugiere una mayor densidad de individuos de Laelia anceps subsp. anceps
en los ambientes con menor incidencia lumínica. Respecto a la producción
floral, se observó 2,0 veces mayor presencia de flores por forofito en dosel
cerrado con relación al dosel abierto, con diferencia significativa (p=
0,03), lo que indica que la condición de baja luminosidad puede estar
influenciando la floración. Se destaca que la producción de cápsulas fue 1,6
veces superior en dosel cerrado; sin embargo, esta diferencia no fue
estadísticamente significativa (p= 0,55), sugiriendo que la eficiencia
de polinización no se puede relacionar con el nivel de luminosidad, aunque
podría estar influenciada por factores micro ambientales como la actividad de
polinizadores en zonas con menos luminosidad.
Tabla 3. Número
de forofitos y promedio de cápsulas e inflorescencia por condición de
luminosidad.
|
Condición
|
Forofito (n)
|
Plantas (n)*
|
Flores (n)*
|
Capsulas (n)
|
|
Dosel abierto
|
26
|
1,4 ±1,1
|
3,2 ±3,3
|
0,3 ±0,7
|
|
Dosel cerrado
|
15
|
2,4 ±1,3
|
6,4 ±9,5
|
0,5 ±1,0
|
|
n= número; * diferencia estadística (p
<0,05).
|
Fuente: Autoría propia.
La
Figura 4 presenta el número total de individuos de Laelia anceps subsp. anceps
y sus respectivas inflorescencias (a) y la dinámica de floración (b) de la
especie a lo largo de tres muestreos bajo condiciones de dosel abierto y
cerrado. La Figura 4a evidencia que se registraron 36 plantas en dosel cerrado
y 38 en dosel abierto, lo que indica una distribución equitativa entre ambas
condiciones de intensidad lumínica. Sin embargo, el número de inflorescencias
fue notablemente mayor en el dosel cerrado, que representó un incremento del
15% en la producción floral bajo sombra. En la Figura 4b se observa la dinámica
de floración de Laelia anceps subsp. anceps en doseles abierto y
cerrado. En el primer muestreo (20 de septiembre), la floración fue baja, con
solo siete flores registradas exclusivamente en dosel cerrado. El segundo
muestreo (6 de octubre) muestra el pico máximo de floración con un total de 341
flores. Para el tercer muestreo (30 de octubre), se observó una
disminución en la floración, con número de flores casi equitativas entre ambas
condiciones de dosel. En conjunto, el 53,6% de las flores se registraron en
dosel cerrado, mientras que el 46,4% se observaron en dosel abierto, lo que
sugiere una ligera tendencia hacia una mayor expresión floral en ambientes
menos expuestos a la radiación solar.
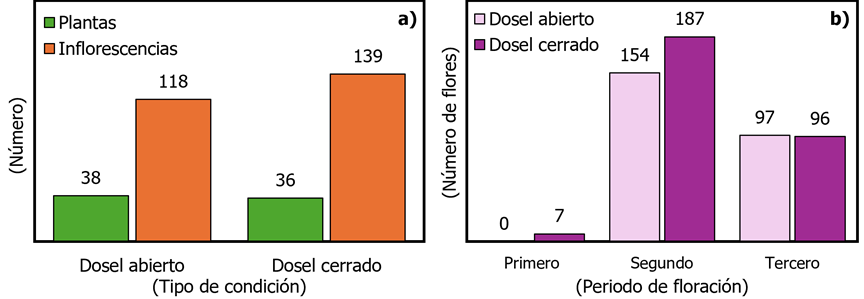
Figura 4. Número de plantas e inflorescencias por
condición de dosel
(a) y número de flores de Laelia anceps subsp. anceps por periodo
de floración (b). Fuente: Autoría propia.
Evaluación de la fenología floral
La
Tabla 4 presenta los valores estadísticos correspondientes a las mediciones
morfológicas de las flores mediante seis estructuras clave. Los resultados evidencian una marcada variabilidad entre
dimensiones, destacándose la longitud total del labelo (Long1) como la
estructura de mayor tamaño. La columna (Long2) presentó una longitud
intermedia, mientras que el estigma (AnE) mostró la menor dimensión y
dispersión. En contraste, la antera exhibió una mayor variabilidad, reflejando
diferencias más pronunciadas en su desarrollo. Estos patrones morfológicos
permiten identificar rasgos distintivos y consistentes dentro de la población
evaluada.
Tabla
4. Datos
estadísticos de la morfología floral de Laelia anceps subsp. anceps.
|
Variable
|
AnL
|
AlL
|
Long1
|
Long2
|
Long3
|
AnE
|
|
Media
|
10,5
|
9,3
|
30,2
|
21,9
|
8,2
|
6,1
|
|
Desviación
estándar (±)
|
1,2
|
0,8
|
3,4
|
1,3
|
3,1
|
0,6
|
|
Los datos
se presentan en unidad de medida de milímetros (mm). AnL: ancho de la entrada
del tubo que conforma el labelo; AlL: altura del tubo que forma el labelo;
Long1: longitud desde la entrada del tubo hasta el fondo del labelo; Long2:
longitud de la columna floral; Long3: distancia desde la entrada del tubo
hasta la cavidad estigmática; AnE: ancho de cavidad estigmática.
Fuente:
autoría propia.
|
|
|
|
|
|
|
|
|
Identificación de visitantes florales y
polinizadores
La
Tabla 5 presenta el listado de visitantes florales registrados en Laelia
anceps subsp. anceps, evidenciando una particular diversidad
taxonómica de organismos con quienes interactúan. Se menciona que algunos de
los visitantes florales no pudieron ser identificados a nivel de género o
especie. Por lo anterior, se identificaron nueve visitantes pertenecientes a
distintas familias, incluyendo insectos polinizadores efectivos como Bombus
medius y Xylocopa tabaniformis (Apidae) y dos morfotipos del género Euglossa,
conocidos por su papel especializado en la polinización de orquídeas. Además,
se registraron visitantes como la mariposa diurna Astraptes fulgerator
(Hesperiidae), el mosquito Lycoriella sp. (Sciaridae), y representantes
de grupos menos comunes como cucarachas verdes (Blatidae), escarabajos
(Curculionidae), arañas cangrejo (Thomisidae) y hormigas (Formicidae). Esta
composición refleja la complejidad ecológica del sistema de polinización de Laelia
anceps subsp. anceps, donde coexisten visitantes especializados y
generalistas, algunos con funciones aún por determinar. La presencia de abejas
del género Euglossa y Bombus refuerza la hipótesis de que Laelia
anceps subsp. anceps mantiene interacciones clave con polinizadores
de alta eficiencia. Cabe mencionar que los dos ejemplares de Euglossa
capturados, fueron hembras como se observa más adelante en la Figura 5 e-f, y
que la presencia de Xylocopa tabaniformis como polinizador representa un
reporte nuevo en esta interacción. También se menciona que los demás
visitantes reportados podrían desempeñar roles adicionales o neutros en el
proceso reproductivo.
Tabla 5.
Registro de los visitantes florales de Laelia anceps subsp. anceps.
|
Familia
|
Género
|
Especie
|
|
Apidae
|
Bombus
|
B. medius
|
|
Euglossa
|
Euglossa sp 1
|
|
Euglossa
|
Euglossa sp 2
|
|
Xylocopa
|
X. tabaniformis
|
|
Formicidae
|
Cephalotes
|
Cephalotes sp
|
|
Hesperiidae
|
Astraptes
|
A. fulgerator
|
|
Thomisidae
|
--
|
--
|
|
Blatidae
|
--
|
--
|
|
Sciaridae
|
Lycoriella
|
Lycoriella sp
|
|
Curculionidae
|
--
|
--
|
Fuente: Autoría
propia.
La
Figura 5 muestra los visitantes florales representativos (a-f) que complementa
de forma visual el registro taxonómico mostrado en la Tabla 5 al ilustrar el
comportamiento observado de los visitantes florales en Laelia anceps subsp.
anceps. Aunque los organismos reportados interactuaron con la flor, la
imagen revela que la mayoría no realizó una polinización efectiva. El registro
visual permitió distinguir tres patrones conductuales como: Figura 5b: forrajeo
de néctar extra floral, donde algunos insectos se acercan a zonas no
reproductivas en busca de recursos energéticos, sin entrar en contacto con las
estructuras polinizadoras. Figura 5c: alimentación floral, donde se observó que
los visitantes consumen pétalos, lo cual puede afectar la integridad de la flor
sin beneficiar la reproducción de la planta. Figura 5d: permanencia pasiva,
donde se observó a los visitantes posados sobre la flor sin interés aparente en
el néctar o polen, posiblemente atraídos por la temperatura, refugio, o simplemente
por azar. Adicionalmente, la Figura 5a documenta de manera puntual el
comportamiento de dos morfotipos del género Euglossa, también conocidas
como abejas de las orquídeas mostrados en la Figura 5e-f. Durante las
observaciones, estas abejas ingresaron activamente al labelo en búsqueda de
recursos florales, saliendo posteriormente con la glosa extendida, lo que
sugiere una interacción significativa con la estructura floral. Sin embargo, la
ausencia de evidencia sobre la remoción de polinios indica que, aunque se
presentan interacciones estrechas con la flor, no se concretó un proceso de
polinización efectiva.
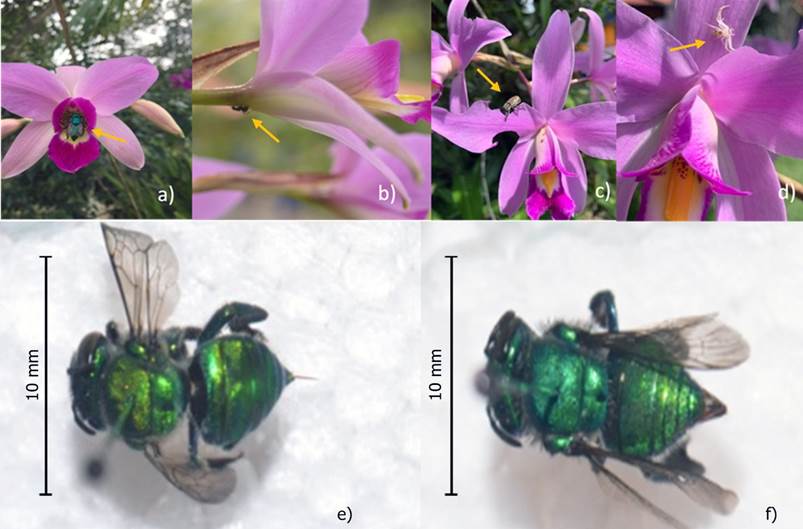
Figura 5. Visitantes florales de Laelia anceps
subsp. anceps. Euglossa sp. (a, e y f), Formiciidae (b),
Curculionidae (c) y Thomisidae (d). Fuente: Autoría propia.
En contraparte, la Figura 6 ofrece una
secuencia visual clave que evidenció el proceso de polinización realizado por Bombus
medius Cresson, 1863, conocido como abejorro serrano. A través de las
imágenes se pudo documentar el proceso que implicó: La entrada del abejorro al
labelo (a), su interacción con los polinios al interior (b), la remoción activa
de los polinios desde la antera (c) y su salida de la flor con los polinios
claramente adheridos al mesosoma (d). Este registro confirma a Bombus
medius como polinizador efectivo, no solo por la observación directa del
comportamiento floral, sino también por la colecta de cuatro individuos con polinios
adheridos (e).
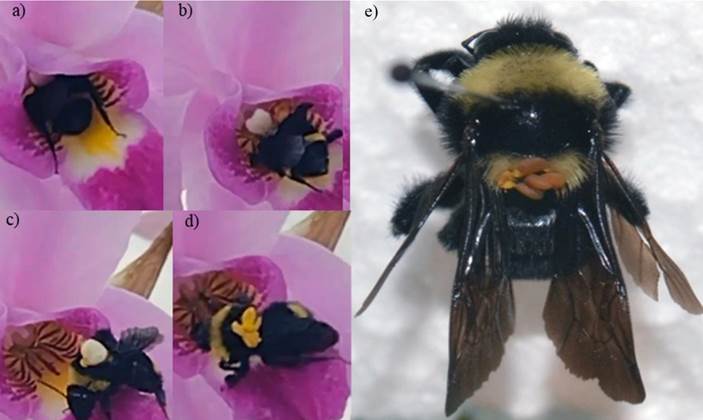
Figura 6. Bombus medius con polinios removidos. La
secuencia muestra: dentro del labelo en busca de alimento (a); saliendo del
labelo con los polinios adheridos al mesosoma (b); cubiertos por el casquete
(c) y con los polinios adheridos (d), individuo capturado con polinios adheridos (e).
Fuente: Autoría propia.
Identificación de patrones guía en las flores
La Figura 7 ilustra el efecto de la exposición a
luz ultravioleta (UV) en las flores de Laelia anceps subsp. anceps
mediante vistas latero medial (a) y anteroposterior (b). La exposición de
flores a luz UV reveló patrones fluorescentes específicos sobre el labelo,
consistentes con la presencia de estructuras conocidas como guías de néctar.
Estas líneas fluorescentes, invisibles a simple vista bajo luz natural cumplen
un papel funcional en la atracción y orientación de polinizadores,
dirigiéndolos hacia la fuente de recompensa floral. La intensidad y disposición
de estas guías sugieren una adaptación morfológica que potencia la eficiencia
polinizadora, incluso en entornos con iluminación atenuada, como los que pueden
encontrarse en hábitats con dosel cerrado.
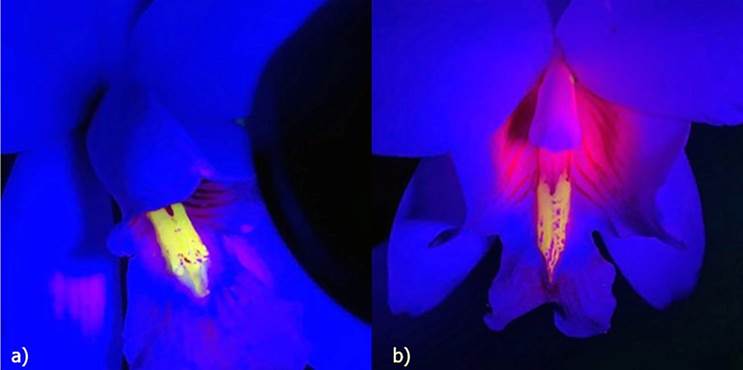
Figura 7. Guías de néctar en flores de Laelia anceps
subsp. anceps. a) vista latero medial; b) vista anteroposterior. Fuente: Autoría
propia.
Discusión
Los resultados obtenidos en este estudio revelan
patrones consistentes en la ecología reproductiva de Laelia anceps subsp.
anceps, particularmente en condiciones lumínicas contrastantes de dosel, la
actividad de visitantes y la morfología floral. La comparación entre la Tabla 3
y la Figura 4a indica que, aunque la especie se ubica en ambos tipos de dosel
(abierto y cerrado), su desempeño reproductivo es superior en ambientes con
menor incidencia solar. Específicamente, se observó una mayor densidad de
plantas por forofito, mayor número de flores por individuo y mayor número total
de inflorescencias en el dosel cerrado. Estos hallazgos coinciden con lo
reportado por otros estudios donde se demostró que un dosel cerrado o sombra
puede favorecer la floración en orquídeas epífitas al mantener condiciones
micro climáticas más estables (Baldelomar et al., 2019).
La Figura 4b refuerza esta tendencia al mostrar
que el 53,6 % de las flores se registraron en sombra
durante la temporada de floración, con un pico máximo a
mediados de octubre. Este patrón sugiere que la luminosidad moderada podría
estar relacionada con la inducción floral. Otros estudios sobre estímulos
lumínicos en la especie también observaron respuestas diferenciadas en
floración bajo luz LED en condiciones controladas
(Romano-Ávila et al., 2025). De igual manera y en cuanto a los
hospederos, las Figuras 3 (a, b, c y d) confirma una asociación con especies
del género Quercus, lo que respalda la afinidad ecológica por bosques de
encino, como lo documentado en otros estudios en jardines urbanos diseñados
para su conservación (Tejeda-Sartorius, 2023). También la presencia de especies
acompañantes epífitas en los forofitos, como Domingoa purpurea, Isochilus
unilateralis y bromelias del género Tillandsia, sugiere que el dosel
cerrado no solo favorece la floración de Laelia anceps subsp. anceps,
sino también una mayor riqueza de especies epífitas, posiblemente por
condiciones de humedad y refugio más estables.
Respecto a la morfología floral, la Tabla 4
muestra dimensiones consistentes con adaptaciones a polinizadores grandes, como
Bombus medius, cuya interacción fue confirmada en los resultados en la
Figura 6. La remoción y deposición de polinios observada en campo, junto con la
adhesión de polinarios al mesosoma de los individuos colectados mostrados en la
figura 6, valida su rol como polinizador efectivo, en concordancia con lo
reportado por otras investigaciones donde se describió que la correspondencia
morfológica entre el labelo de Laelia anceps subsp. anceps y el
tórax de Bombus medius puede ser una de las claves para la polinización
exitosa (Rodríguez Flores et al., 1996). Otro punto importante corresponde a
que Xylocopa tabaniformis coincide morfológicamente con el tamaño de B.
medius y que de igual forma remueve y deposita los polinarios. Cabe
mencionar que el género Xylocopa ha sido ampliamente reportado como
polinizador en otras especies del grupo Laeliinae (Alanís-Méndez et al., 2019;
Damon & Salas-Roblero, 2007; Parra-Tabla et al., 2009), y puntualmente X. tabaniformis se reportó
como polinizador en el género Barkeria. Por lo que el nuevo reporte de
esta investigación contribuye al conocimiento de las interacciones entre este
grupo de abejas carpinteras y la familia Orchidaceae.
Por otro lado, la secuencia de imágenes exhibidas
en la Figuras 5 muestra la visita de abejas del género Euglossa,
conocidas como abejas de las orquídeas, que, aunque ingresaron al labelo en
búsqueda de alimento, no realizaron remoción de polinios. Este comportamiento
oportunista también ha sido documentado por otros estudios donde señalan que no
todas las especies de Euglossini actúan como polinizadores efectivos, y
que su eficiencia puede depender de la estructura floral y la disponibilidad de
recompensas (Parra-H. et al., 2016). De hecho, la presencia de visitantes
florales no funcionales, como escarabajos, moscas y hormigas, que interactúan
con las flores sin contribuir a la polinización se mostró en la Figura 5a-d.
Esta coexistencia de visitantes especializados y generalistas ha sido descrita
por investigaciones anteriores donde destacan la importancia de diferenciar
entre visitantes efectivos y oportunistas para comprender la dinámica
reproductiva de las orquídeas (Cervantes-Llamas et al., 2018).
Finalmente,
la Figura 7 presentó la exposición a luz UV en las flores de Laelia anceps
subsp. anceps, donde se reveló la presencia de guías nectaríferas
fluorescentes en el labelo. Este resultado exhibe la existencia de un mecanismo
visual de atracción para polinizadores como Bombus medius que poseen
visión en el espectro UV como fue reportado en otras investigaciones (Brasero
et al., 2019). De hecho, este tipo de señalización ha sido asociada con mayor
eficiencia en la polinización en estudios donde se vinculan la presencia de
guías UV con tasas más altas de remoción y depósito de polinios en orquídeas
tropicales (de Camargo et al., 2019).
Conclusión
Esta
investigación logró una evaluación de la influencia de diferentes parámetros
ecológicos sobre la reproducción de Laelia anceps subsp. anceps. El
análisis de las condiciones de dosel mostró que la baja incidencia lumínica,
representado por el dosel cerrado, favorece la densidad poblacional y la
producción floral de Laelia anceps subsp. anceps. Debido a
que los resultados mostraron que los individuos establecidos en dosel cerrado
presentaron mayor número de plantas por forofito y más flores e
inflorescencias, lo que confirma que la sombra constituye un factor ambiental
determinante para su éxito reproductivo. También la evaluación de la fenología
floral reveló que el pico de floración se concentró en octubre, con predominio
nuevamente en dosel cerrado. Las mediciones morfológicas reflejaron
consistencia en estructuras clave como el labelo y la columna, lo que sugiere
estabilidad en los rasgos reproductivos bajo diferentes condiciones lumínicas.
La mayor proporción de flores y cápsulas en ambientes sombreados refuerza la
hipótesis de que las condiciones micro climáticas influyen positivamente en la dinámica
reproductiva de la especie.
Esta
investigación logró el registro de visitantes florales y polinizadores
correspondientes a una comunidad diversa, con la abeja Bombus medius
como polinizador efectivo y Xylocopa tabaniformis como nuevo visitante
registrado, que anteriormente no han sido documentados en estudios de Laelia
anceps. Adicionalmente, la presencia de abejas del género Euglossa y
otros organismos generalistas confirma la complejidad del sistema de
polinización de la orquídea. En conjunto, los resultados demostraron que
la interacción entre estructura poblacional, fenología floral y diversidad de
visitantes está estrechamente vinculada a las condiciones de dosel, subrayando
la necesidad de estrategias de conservación que mantengan la integridad
ecológica de los hospederos ubicados en los bosques de encino.
Agradecimientos:
El primer autor agradece la beca del CONACYT para
cursar la Maestría en Ciencias del Ambiente en la Facultad de Ciencias
Biológicas y Agropecuarias de la Universidad Veracruzana de la región Poza
Rica- Tuxpan, Veracruz, México.
Contribución
de autores: 1.Conceptualización: A.M.H. y J.L.A.M.; 2.Curación
de datos: A.M.H. y I.A.C.F. ; 3.Análisis formal: F.J.S.P.
y I.A.C.F.; 4.Adquisición de fondos: A.M.H. y
J.L.A.M. ;5.Investigación: A.M.H.; 6.Metodología:
J.L.A.M.
y M.A.L.R. ;7.Administración del Proyecto: J.L.A.M. ; 8.Recursos:
M.A.L.R.
y J.L.A.M. ; 9.Software: F.J.S.P. ; 10.Supervisión:
J.L.A.M.,
I.A.C.F. y M.A.L.R. ; 11.Validación: J.L.A.M.,
M.A.L.R. ; 12.Visualización: A.M.H. y F.J.S.P. ; 13.Redacción-borrador
original: A.M.H.; 14.Redacción-revisión y edición: J.L.A.M.
y F.J.S.P.
Fuente
de Financiamiento: Esta investigación no recibió financiamiento
externo.
Disponibilidad
de datos: Los datos utilizados en esta investigación podrán ser
solicitados mediante solicitud al autor de correspondencia según pertinencia.
Correo electrónico: lalanis@uv.mx.
Revisión
por pares: Este artículo fue evaluado mediante un proceso de
revisión por pares doble ciego.
Referencias
Bibliográficas
Aini,
N., Chikmawati, T., Sulistijorini, S., Djuita, N. R., & Ariyanti, N. S.
(2022). Diversity and Distribution Patterns of Epiphytic Orchid in the
Nirmala Tea Plantation, Bogor West Java. Journal of Biology & Biology
Education, Biosaintifika, 14(1). https://doi.org/10.15294/biosaintifika.v14i1.35076
Alanís-Méndez,
J. L., Martínez-Castillo, I. A., Viveros-Valencia, J., Sosa-Constantino, F. G.,
& Limón-Salvador, F. (2023). Archaeological Sites as a Safeguard
for Orchid Diversity: A Study in El Tajin, Veracruz, Mexico. Natural
Areas Journal, 43(3), 179-184. https://doi.org/10.3375/22-23
Alanís-Méndez,
J. L., Ortíz-Santos, L. del C., Chamorro-Florescano, I. A., Pech-Canché, J. M.,
& Limón-Salvador, F. (2019). Polinizadores y visitantes florales
de dos orquídeas en un área natural protegida en Tuxpan, Veracruz. Ecosistemas
y recursos agropecuarios, 6(17), 361–368. https://doi.org/10.19136/ERA.A6N17.1922
Álvarez, C.
C., López, A. M., Torres, D. G. C., Rico, D. T., & Miranda, J. J. M.
(2023). Orquídeas: amenazas de su existencia, formas de conservación y
protección. Jandiekua, Revista Méxicana de Educación Ambiental, 7(9),
44–59. https://leka.uaslp.mx/index.php/jandiekua/article/view/378
Baldelomar,
M., Atala, C., & Molina-Montenegro, M. A. (2019). Top-Down
and Bottom-Up Effects Deployed by a Nurse Shrub Allow Facilitating an Endemic
Mediterranean Orchid. Frontiers in Ecology and Evolution, 7. https://doi.org/10.3389/fevo.2019.00466
Brasero,
N., Vandame, R., Sagot, P., Martinet, B., Valterová, I., & Rasmont, P.
(2019). Thoracobombus from Mexico: a description of the male species-specific
cephalic labial gland secretions. Apidologie, 50(2), 184-194. https://doi.org/10.1007/s13592-018-0629-4
Cardoso,
J. C. F., Johnson, S. D., & Oliveira, P. E. (2024). Incomplete resupination
during floral development leads to pollination failure in a slipper orchid. Plant
Biology, 26(1), 34-40. https://doi.org/10.1111/plb.13587
Cervantes-Llamas,
M., Treviño-Carreón, J., Coronado-Blanco, J. M., & Hernández-López, T. J.
(2018). Visitantes florales de las orquídeas. Boletín de la Sociedad
Mexicana de Entomología, 4 (2), 49–52. https://revistas.acaentmex.org/index.php/boletin/article/view/187
Damon,
A., & Salas-Roblero, P. (2007). A survey of pollination in
remnant orchid populations in Soconusco, Chiapas, Mexico. Tropical
Ecology, 48(1). https://www.researchgate.net/publication/237295262_A_survey_of_pollination_in_remnant_orchid_populations_in_Soconusco_Chiapas_Mexico
de
Camargo, M. G. G., Lunau, K., Batalha, M. A., Brings, S., de Brito, V. L. G.,
& Morellato, L. P. C. (2019). How flower colour signals
allure bees and hummingbirds: a community-level test of the bee avoidance
hypothesis. New Phytologist, 222(2), 1112–1122. https://doi.org/10.1111/NPH.15594
Rodríguez
Flores, L. R., Barney-Guillermo, H. B., & Vázquez-Torres, M. M. (1996). Registro
de la polinización en Laelia anceps LDL.(Orchidaceae).
Repositorio institucional Universidad Veracuzana. https://cdigital.uv.mx/bitstreams/e2d8ab25-81ec-4a2d-8a78-79f1e2aa6d60/download
Hartvig,
I., Kosawang, C., Rasmussen, H., Kjær, E. D., & Nielsen, L. R. (2024). Co-occurring
orchid species associated with different low-abundance mycorrhizal fungi from
the soil in a high-diversity conservation area in Denmark. Ecology
and Evolution, 14(2), e10863.
https://doi.org/10.1002/ece3.10863
Hernández-García,
A., Zavala-Ruiz, J., Jaén-Contreras, D., & Baltazar-Bernal, O. (2021). Laelia
anceps Lindl. (Orchidaceae) adaptation on phorophytes within an anthropized
landscape, Amatlán de los Reyes, Veracruz, Mexico. Agro
Productividad. https://doi.org/10.32854/agrop.v14i12.2148
Instituto
Nacional de Estadística y Geografía. (2010). Compendio de información
geográfica municipal 2010. Naolinco, Veracruz de Ignacio de la Llave.
INEGI. www.inegi.org.mx/contenidos/app/mexicocifras/datos_geograficos/30/30112.pdf
Krahl,
D. R. P., Schmal, P., Chiron, G., Da Silva, J. B. F., Krahl, A. H., &
Cantuária, P. D. C. (2024). Catasetum queirozii
(Orchidaceae: Catasetinae): a new species from the Brazilian Amazon. Acta
Amazonica, 54(1), e54bc23180. https://doi.org/10.1590/1809-4392202301801
Lee
Espinosa, H. E., Cerda, A. L., González, J. M., Martínez, P. E., Andreu, L. I.,
Rosas, B. G., Barredo Pool, F. A., & Buzzy, N. S. (2008). In
vitro Regeneration of Laelia Anceps ssp. Dawsonii. Revista
UDO Agrícola, 7 (1), 58-67. http://hdl.handle.net/1807/45386
Li,
W. G., Liu, J. R., Sun, H., Liu, J. Y., Sun, K., & Wang, L. (2024). The
Controversial of Phylogenetic Status in an Unknown Orchidaceae Genus. Russian
Journal of Genetics, 60(5), 595–603. https://doi.org/10.1134/S1022795424700030/METRICS
Muñoz-Hernández,
A. E., Figueroa-Castro, D. M., & Campos-Villanueva, Á. (2020). Seasonal
variation in the diversity of flowering orchids at Santa Catarina Lachatao,
Oaxaca, Mexico. Botanical Sciences, 98(3).
https://doi.org/10.17129/BOTSCI.2516
Olivares-Juárez,
M. I., Burgos-Hernández, M., & Santiago-Alvarádo, M. (2022). Patterns
of Species Richness and Distribution of the Genus Laelia s.l. vs.
Laelia s.s. (Laeliinae: Epidendroideae: Orchidaceae) in Mexico: Taxonomic
Contribution and Conservation Implications. Plants, 11(20). https://doi.org/10.3390/plants11202742
Parra-H.,
A., Otero, J. T., Sandino, J. C., & Ospina, T. R. (2016). Abejas de las
orquídeas (Hymenoptera: Apidae Euglossini) y su importancia como
polinizadoras de amplio rango en ecosistemas naturales. En G. Nates, Iniciativa
Colombiana de Polinizadores. Capítulo 9, (pp. 141-155). Bogotá.
Universidad Nacional de Colombia. https://www.researchgate.net/publication/311103607_ABEJAS_DE_LAS_ORQUIDEAS_HYMENOPTERA_APIDAE_EUGLOSSINI_Y_SU_IMPORTANCIA_COMO_POLINZADORAS_DE_AMPLIO_RANGO_EN_ECOSISTEMAS_NATURALES
Parra-Tabla,
V., Abdala-Roberts, L., Rojas, J. C., Navarro, J., & Salinas-Peba, L.
(2009). Floral longevity and scent respond to pollen manipulation and
resource status in the tropical orchid Myrmecophila christinae. Plant
Systematics and Evolution, 282(1), 1–11. https://doi.org/10.1007/S00606-009-0206-4
Romano-Ávila,
V. H., Rivero-Bautista, N. Del, Caamal-Velázquez, J. H., Sol-Sánchez, Á.,
Mayo-Mosqueda, A., & Pech, R. G. A.-. (2025). Efecto de la iluminación LED
sobre la multiplicación in vitro de Laelia anceps Lindl. Ecosistemas
y Recursos Agropecuarios, 12(2), e4241. https://doi.org/10.19136/ERA.A12N2.4241
Secretaría
de Medio Ambiente y Recursos Naturales. (2010). NOM-059-SEMARNAT-2010.
Protección ambiental - Especies nativas de México de flora y fauna silvestres -
Categorías de riesgo y especificaciones para su inclusión, exclusión o cambio -
Lista de especies en riesgo. Diario Oficial de la Federación. https://www.dof.gob.mx/normasOficiales/4254/semarnat/semarnat.htm
Tejeda-Sartorius,
O. (2023). Jardín urbano de la orquídea Laelia anceps Lindley
(Orchidaceae) y sus polinizadores naturales. Agro-Divulgación, 3(4),
65-70. https://doi.org/10.54767/AD.V3I4.230
Tejeda-Sartorius,
O., Soto-Hernández, R. M., Miguel-Chávez, R. S., Trejo-Téllez, L. I., &
Caamal-Velázquez, H. (2022). Endogenous Hormone Profile and
Sugars Display Differential Distribution in Leaves and Pseudobulbs of Laelia
anceps Plants Induced and Non-Induced to Flowering by Exogenous Gibberellic
Acid. Plants, 11(7), 845. https://doi.org/10.3390/plants11070845
Téllez-Velasco,
M. A. A. & Tejeda-Sartorius, O. (2013). La importancia de los aromas en la
polinización de las Orquídeas. Agro Productividad, 6(3), 42-49. https://revista-agroproductividad.org/index.php/agroproductividad/article/view/463
Ticktin,
T., Charitonidou, M., Douglas, J., Halley, J. M., Hernández-Apolinar, M., Liu,
H., Mondragón, D., Pérez-García, E. A., Tremblay, R. L., & Phelps, J.
(2023). Wild orchids: A framework for identifying and improving
sustainable harvest. Biological Conservation, 277, 109816. https://doi.org/10.1016/J.BIOCON.2022.109816
 , Miguel Ángel Lozano Rodríguez1
 , José Luis Alanís Méndez1*
 , Universidad Nacional de
Asunción (UNA). Centro Multidisciplinario de Investigaciones Tecnológicas
(CEMIT). San Lorenzo, Paraguay.
