Introducción
Uno de los principales factores que limitan la
productividad de los cultivos a nivel mundial son los fitopatógenos
responsables de pérdidas económicas significativas en la agricultura (Savary et
al., 2019). El pimiento (Capsicum spp.) es uno de los productos
hortícolas más importantes que se cultivan en todo el mundo, sin embargo, su
producción se ve seriamente afectada por diversos fitopatógenos, entre los
cuales destacan Phytum spp., que atacan a los primeros estadios de
plantines (Jiménez-Pérez et al., 2022), Fusarium oxisporum causante de
la podredumbre radicular y marchitez del pimiento, Rhizoctonia solani y Sclerotinia
sclerotiorum, causantes de la pudrición de raíz y la podredumbre blanca,
respectivamente (Pérez-Hernández et al., 2014; El-Kazzaz et al., 2022; Frimpong
et al., 2019; Erper et al., 2021; Yanar & Miller, 2003).
El uso de productos químicos puede ser eficaz
para el control de estos fitopatógenos, sin embargo, su aplicación
indiscriminada provoca contaminación del suelo, el aire, el agua e incluso de
los propios productos agrícolas (Raffa & Chiampo, 2021; Tudi et al., 2021).
Por esta razón, en los últimos años se ha intensificado la investigación
orientada al desarrollo de métodos alternativos para el control de patógenos en
cultivos frutihortícolas.
Una alternativa al uso de productos químicos en
la agricultura es la aplicación de agentes de biocontrol, particularmente mediante
el uso de microorganismos antagonistas. Estos organismos pueden limitar la
aparición y propagación de enfermedades causadas por patógenos vegetales a
través de mecanismos como la competencia por nutrientes y espacio, la
antibiosis y la inducción de resistencia en las plantas. Entre ellos, destacan
los hongos del género Trichoderma, reconocidos por sus excelentes
cualidades, como su versatilidad, adaptabilidad y facilidad de manipulación, lo
que ha favorecido su uso en el manejo de enfermedades provocadas por
fitopatógenos fúngicos del suelo como Rhizoctonia, Sclerotium, Phytophthora,
Pythium y Fusarium, entre otros patógenos (Cortez-Lázaro et al.,
2025, Mao et al., 2020; Hewedy et al., 2020; El-Kazzaz et al., 2022;
Sánchez-Montesinos et al., 2019; Liu et al., 2022). El género Trichoderma es
componente fundamental del microbioma vegetal, que contribuye de forma
significativa a prácticas agrícolas sostenibles al promover el crecimiento de
las plantas, mejorar la absorción de nutrientes, reforzar la resistencia frente
a estrés abiótico y controlar la proliferación de patógenos (Guzmán-Guzmán et
al., 2025).
El género Trichoderma ejerce su acción
antagonista frente a los fitopatógenos principalmente a través de tres
mecanismos: (i) competencia directa por espacio y nutrientes, (ii) antibiosis
mediante la producción de metabolitos secundarios, tanto volátiles como no
volátiles, y (iii) micoparasitismo directo sobre especies de hongos
fitopatógenos (Guzmán-Guzmán et al., 2025; Joo & Hussein, 2022; Stange et al.,
2024).
Estudios previos han demostrado que aislados
nativos de Trichoderma spp. poseen propiedades antifúngicas
significativas y pueden contribuir a la reducción del uso de agroquímicos,
promoviendo sistemas agrícolas más sostenibles (Sanabria-Velázquez et al.,
2025; Sanabria-Velázquez, 2020). Varios Trichoderma spp. exhiben
actividades antifúngicas frente a hongos fitopatógenos (Vizcaíno et al., 2005), en las
cuales pueden estar involucrados distintos grupos de metabolitos secundarios,
como terpenos, pironas, gliotoxina, gliovirina y peptaiboles
(Vinale et al., 2008; Vinale et al., 2014). A pesar de ello, la información
disponible acerca de la influencia de las moléculas secretadas por los aislados
nativos de Trichoderma en los mecanismos de biocontrol sigue siendo
limitada.
El
presente estudio tuvo como objetivo evaluar la producción de metabolitos por
aislados nativos paraguayos de Trichoderma spp. y su actividad
antifúngica frente a R. solani y S. sclerotiorum, patógenos
del pimiento.
Materiales y Métodos
Microorganismos
La
investigación se realizó en el Departamento de Química Biológica de la Facultad
de Ciencias Químicas, Universidad Nacional de Asunción. Se emplearon como
fitopatógenos Rhizoctonia solani y Sclerotinia sclerotiorum, y
como antagonistas, aislados del género Trichoderma spp. procedentes de
distintas localidades del país (Tabla 1). Tanto los fitopatógenos como los
antagonistas se mantuvieron en medio Papa-Dextrosa-Agar (PDA) e incubaron a 30
°C en condiciones de oscuridad.
Tabla 1. Aislados de fitopatógenos y antagonistas nativos
de Trichoderma spp. utilizados en el estudio.
|
Lugar de colecta
|
Distrito
|
Tipo de muestra
|
Cultivo
|
Especie2
|
Código de aislado
|
|
Central
|
Capiatá
|
Rizosfera
|
Pimiento
|
Rhizoctonia solani
|
FCQ35
|
|
Cordillera
|
Cabañas
|
Materia Vegetal
|
Pimiento
|
Sclerotinia sclerotiorum
|
FCQ40
|
|
Itapúa
|
Tomas RP1
|
Suelo
|
Tomate
|
Trichoderma neokoningii.
|
FCQ13
|
|
Itapúa
|
Tomas RP
|
Suelo
|
Tomate
|
Trichoderma sp.
|
FCQ14
|
|
Itapúa
|
Tomas RP
|
Suelo
|
Tomate
|
Trichoderma harzianum.
|
FCQ16
|
|
Itapúa
|
Tomas RP
|
Suelo
|
Tomate
|
Trichoderma koningiopsis.
|
FCQ19
|
|
Itapúa
|
Tomas RP
|
Rizosfera
|
Pimiento
|
Trichoderma harzianum.
|
FCQ23
|
|
Itapúa
|
Tomas RP
|
Suelo
|
Pimiento y cebollita
|
Trichoderma sp.
|
FCQ28
|
|
Central
|
Capiatá
|
Suelo
|
Pimiento
|
Trichoderma harzianum
|
FCQ32
|
|
Cordillera
|
Barrero
|
Suelo
|
Pimiento
|
Trichoderma asperellum.
|
FCQ42
|
1Tomás
Romero Pereira
2 Sanabria-Velázquez
et al., (2023)
Obtención de extractos orgánicos de Trichoderma
spp.
Para obtener los extractos orgánicos, se
inocularon tres discos de micelio de 5 mm de diámetro de los aislados de Trichoderma
spp., obtenidos a partir de medio de cultivo PDA, en cinco botellas Roux que
contenían 200 mL de medio de cultivo líquido PDB (Papa-Dextrosa-Caldo,
Liofilchem®). Los frascos de PDB inoculados se mantuvieron a 30 °C durante 7
días, en oscuridad y en condiciones estáticas. El control negativo (también
utilizado como control de esterilidad) fue el medio PDB sin inóculo, mantenido
en las mismas condiciones. El micelio se separó del medio de cultivo líquido
mediante filtración con gasa, y la extracción del filtrado se realizó tres
veces con acetato de etilo (AcOEt), en proporción de filtrado:solvente orgánico
(1:½; 1:½; 1:½) (Cubilla-Ríos et al., 2019). Las fracciones
orgánicas se secaron con sulfato de sodio anhidro (Na₂SO₄) y se
filtraron con papel de filtro. Posteriormente, se evaporaron en un rotavapor.
Se registraron los pesos de los extractos orgánicos obtenidos, expresado en mg
de extracto orgánico por litro de medio de cultivo PDB líquido (mg/L), y se
almacenaron a -20 °C hasta su utilización.
Evaluación de la actividad antifúngica de los
extractos orgánicos de Trichoderma spp.
Para evaluar la actividad antifúngica se siguió
la metodología descrita por Vinale et al. (2006) con modificaciones. Los
extractos orgánicos de Trichoderma spp. se disolvieron en una solución
acuosa de dimetilsulfóxido (DMSO) al 5 %, obteniendo una concentración final de
20 μg/μL. Discos de micelio de 5 mm de diámetro de R. solani y S.
sclerotiorum, tomados de la zona de crecimiento activo en medio
Papa-Dextrosa-Agar (PDA), se colocaron en el centro de placas de Petri que
contenían 10 mL de PDA. Sobre cada disco de micelio se depositaron 10 μL de la
solución de extracto crudo, equivalentes a 200 μg de extracto por disco. Como
control positivo se empleó tebuconazol disuelto en DMSO al 5 % (200 μg por
placa), mientras que como control negativo se utilizaron 10 μL de DMSO al 5 %.
Las placas se incubaron a 25 °C durante 48 horas, o hasta que el control
negativo cubrió toda la placa, registrándose el diámetro de crecimiento de
micelio cada 12 horas. Todos los ensayos se realizaron por triplicado, y los
resultados se expresaron como promedio ± desviación estándar.
Para la evaluación de la
actividad antifúngica se determinó el porcentaje de inhibición del crecimiento
(PIC)(Gibbs, 1967) de S. sclerotiorum y R.
solani utilizando la siguiente ecuación:
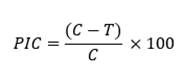
Donde, C es la medida del crecimiento del
fitopatógeno en la placa de control negativo, T es la medida del crecimiento
del fitopatógeno en la placa del ensayo.
Análisis
del perfil cromatográfico de los extractos orgánicos de Trichoderma spp.
Para el análisis por cromatografía en capa
delgada (CCD) los extractos orgánicos fueron resuspendidos en acetato de etilo
y fueron analizados en cromatofolios de gel de sílice 60 F254 (0,20
mm de grosor, 4 x 6 cm) utilizados como fase estacionaria; y una mezcla de
hexano: acetato de etilo (60:40) como fase móvil (Cubilla-Ríos et al., 2019).
Las placas fueron visualizadas bajo luz ultravioleta a 254 nm y 366 nm, y
posteriormente se reveló con vainillina. Los extractos orgánicos se disolvieron
en acetonitrilo (ACN) y fueron analizados en un cromatógrafo líquido de alta
eficacia (UPLC) marca Waters, modelo Acquity acoplado a detectores de arreglo
de Diodos (Photo Diode Array, PDA) y un detector de masas en tándem (MS/MS). La
columna C-18 utilizada fue de la marca Acquity, modelo BHE (1,7 micras y 3cm x
2,1 mm). Las condiciones cromatográficas fueron: inyección automática de las
muestras utilizándose como fase móvil una mezcla de agua, con 0,1% de ácido
fórmico y 0,5% de amoníaco, más metanol en gradiente de concentración de 0 a
100% de metanol, con un tiempo de corrida de 10 min y flujo de 0,4mL/min
(Cubilla-Ríos et al., 2019). El software utilizado para el análisis
cromatográfico fue MassLynx® para Windows.
Resultados
y Discusión
Rendimiento de los extractos orgánicos
Para la obtención de los metabolitos secretados
por los aislados de Trichoderma spp., se prepararon extractos orgánicos
a partir de los medios de cultivo tras el crecimiento y posterior separación
del micelio por filtración. Se utilizaron seis aislados de Trichoderma previamente
identificados (Sanabria-Velázquez et al., 2023), además
dos aislados (FCQ14 y FCQ28) identificados a nivel de género. El mayor
rendimiento fue del aislado FCQ19 con 396,7 mg/L, mientras que el menor se
registró en el aislado FCQ13 con 22,6 mg/L (Tabla 2).
Tabla
2. Rendimiento
de los extractos orgánicos de Trichoderma spp.
|
Aislados de Trichoderma
|
Rendimiento (mg/L)
|
|
T. noekoningii FCQ13
|
22,6
|
|
Trichoderma sp. FCQ14
|
82,3
|
|
T. harzianum FCQ16
|
55,5
|
|
T. koningiopsis FCQ19
|
396,7
|
|
T. harzianum FCQ23
|
132,3
|
|
Trichoderma sp. FCQ28
|
125,3
|
|
T. harzianum FCQ32
|
74,3
|
|
T. asperellum FCQ42
|
59,0
|
Evaluación
de la actividad antifúngica
Se evaluó la actividad antifúngica de los
extractos orgánicos de Trichoderma spp. frente a los fitopatógenos. El
extracto del aislado de Trichoderma sp. FCQ14 mostró una inhibición del
100 % sobre ambos fitopatógenos durante todo el ensayo, mientras que el aislado
de T. asperellum FCQ42 logró un 100% de inhibición únicamente frente a S.
sclerotiorum (Tabla 3).
Tabla
3. Ensayo
de actividad antifúngica frente a hongos fitopatógenos.
|
|
PIC* Rhizoctonia solani
FCQ35
|
|
|
12 h
|
24 h
|
36 h
|
48 h
|
|
Tebuconazol
|
100,0±0
|
100,0±0
|
79,9±3,1
|
78,2±1,2
|
|
T.
noekoningii
FCQ13
|
100,0±0
|
66,0±3,7
|
53,8±9,3
|
22,6±13,5
|
|
Trichoderma
sp.
FCQ14
|
100,0±0
|
100,0±0
|
100,0±0,0
|
100,0±0,0
|
|
T.
harzianum
FCQ16
|
35,8±3,3
|
41,5±6,6
|
26,5±10,9
|
20,5±14,2
|
|
T.
koningiopsis
FCQ19
|
37,7±5,7
|
29,8±8,4
|
21,6±8,6
|
15,3±9,5
|
|
T.
harzianum
FCQ23
|
100,0±0
|
41,3±8,6
|
11,0±3,0
|
8,4±6,2
|
|
Trichoderma
sp.
FCQ28
|
100,0±0
|
16,3±3,8
|
3,5±7,0
|
4,9±0
|
|
T.
harzianum
FCQ32
|
100,0±0
|
100,0±0
|
68,4±3,5
|
54,7±2,4
|
|
T.
asperellum FCQ42
|
100,0±0
|
63,3±6,8
|
37,6±22,2
|
46,3±15,6
|
|
|
PIC* Sclerotinia sclerotiorum
FCQ40
|
|
Tebuconazol
|
100,0±0
|
100,0±0
|
100,0±0
|
100,0±0
|
|
T.
noekoningii
FCQ13
|
27,30±9,10
|
33,30±12,30
|
20,90±11,00
|
12,90±8,20
|
|
Trichoderma
sp.
FCQ14
|
100,0±0
|
100,0±0
|
100,0±0
|
100,0±0
|
|
T.
harzianum
FCQ16
|
45,5±48,1
|
33,3±26,5
|
8,8±38,2
|
8,26±5,9
Cont. Tabla 3
|
|
|
|
|
|
|
|
Cont. Tabla 3
|
PIC* Sclerotinia sclerotiorum
FCQ40
|
|
|
12 h
|
24 h
|
36 h
|
48 h
|
|
T.
koningiopsis FCQ19
|
100,0±0
|
46,0±33,8
|
39,2±10,2
|
32,8±9,1
|
|
T.
harzianum
FCQ23
|
18,2±0
|
2,4±3,4
|
3,3±1,5
|
0,83±0
|
|
Trichoderma
sp.
FCQ28
|
0,0±0
|
4,8±0
|
3,3±2,2
|
1,6±1,2
|
|
T.
harzianum
FCQ32
|
100,0±0
|
47,6±4,8
|
37,0±3,4
|
28,9±4,4
|
|
T.
asperellum
FCQ42
|
100,0±0
|
100,0±0
|
100,0±0
|
100,0±0
|
|
*PIC: [(C-T) / C] X 100, PIC: Porcentaje de inhibición del
crecimiento, C: Crecimiento del control, T: Crecimiento del patógeno en el
ensayo. Los resultados se presentan como media ± desviación estándar.
|
Estos resultados evidencian una alta variabilidad
en la actividad antifúngica de los extractos orgánicos obtenidos frente a ambos
patógenos, incluso dentro de la misma especie. La variabilidad entre especies
de Trichoderma y su relación especie–actividad es notable y compleja,
reflejando diferencias genéticas, fisiológicas, ecológicas y su capacidad de
producir metabolitos secundarios (Jambhulkar et al., 2024; Wang et al., 2022;
Zhang et al., 2021; Hewedy et al., 2020). Esta diversidad constituye un factor clave
para su eficacia como agentes de biocontrol, promotores del crecimiento vegetal
y productores de metabolitos bioactivos.
Los aislados de T. neokoningii FCQ13, T.
harziamun FCQ23 y FCQ32 y T. asperellum FCQ42 mostraron una elevada
inhibición del crecimiento inicial frente a R. solani, mientras que los
aislados T. koningiopsis FCQ19 y T. harzianum FCQ32 mostraron
elevada inhibición inicial frente a S. sclerotiorum. Otras cepas de T.
harzianum y T. asperellun han demostrado previamente su eficacia
en la inhibición de los fitopatógenos R. solani y S.
sclerotiorum (Ahluwalia
et al., 2015; Zhang et al., 2016; Mirsam et al., 2023), sin embargo, de
acuerdo con la información disponible no existen trabajos previos que describan
el biocontrol ejercido por T. neokoningii sobre S. sclerotiorum. En todos los casos mencionados
la actividad inhibitoria fue disminuyendo progresivamente en el tiempo, lo que
sugiere la existencia de un mecanismo de biotransformación de las moléculas
bioactivas presentes, dada la capacidad de
biotransformación de compuestos bioactivos que ha sido demostrada previamente
en M. phaseolina, una concentración baja o
inestabilidad de los metabolitos presentes. (Salvatore et al., 2025).
Rhizoctonia solani presenta diversos mecanismos de desintoxicación y resistencia que
favorecen su supervivencia frente a compuestos antifúngicos naturales y
sintéticos. Se ha demostrado que transforma la fitoalexina camalexina en
derivados polares menos tóxicos mediante oxidación del anillo indólico (Pedras
& Khan, 2000) y que metaboliza la sakuranetina del arroz en naringenina y
derivados xilósidos inactivos, reduciendo así su efecto antifúngico (Katsumata
et al., 2018). Asimismo, desarrolla resistencia a fungicidas como SYP-14288 a
través de la acción de citocromos P450 y glutatión-S-transferasas, los cuales
generan metabolitos más hidrosolubles que facilitan su eliminación celular
(Cheng et al., 2022). De manera similar, S. sclerotiorum despliega
múltiples mecanismos de desintoxicación que le permiten neutralizar defensas
químicas vegetales, degrada flavonoles mediante la acción de la quercetina
dioxigenasa (Chen et al., 2019), inactiva fitoalexinas crucíferas como
brasilexina y sinalexina a través de glucosilación (Pedras & Hossain, 2006)
y detoxifica isotiocianatos mediante conjugación con glutatión o hidrólisis
enzimática (Chen et al., 2020) mecanismos que en conjunto potencian su
virulencia.
La
Figura 1 muestra imágenes representativas del ensayo de actividad antifúngica
entre el extracto obtenido de Trichoderma FCQ23 y R. solani FCQ35
a las 12, 24, 36 y 48 horas; también se muestran los respectivos controles.
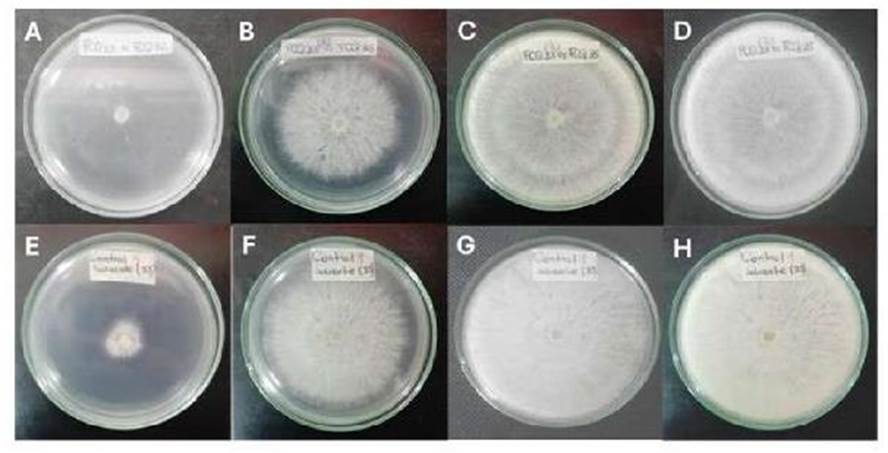
Figura
1.
Imágenes representativas del seguimiento del crecimiento micelial a 12 h (A),
24 h (B), 36 h (C) y 48 h (D). Panel inferior: controles negativos
correspondientes a cada tiempo: 12 h (E), 24 h (F), 36 h (G) y 48 h (H).Fuente:
Autoría propia
Evaluación cromatográfica de los extractos
orgánicos de Trichoderma
Todos los extractos orgánicos crudos fueron analizados
mediante CCD y cromatografía líquida (UPLC-MS/MS-PDA) (Figura S1, Figura S2). El
análisis preliminar por CCD de los extractos orgánicos reveló complejidad y
diversidad en la composición química de los diferentes extractos de Trichoderma
spp. En FCQ 14 se pudo visualizar un compuesto mayoritario con relación de
frente (Rf) 0,68 que podría ser el responsable de la actividad observada. En el
cromatograma del extracto orgánico crudo de Trichoderma FCQ14 obtenido
con UPLC-MS/MS-PDA aparece un compuesto mayoritario en el tiempo de retención
(tr) 2,74 min, cuyo espectro ESI+ presenta iones estables con m/z
293 (C17H25O4+) y m/z 315 (C17H24O4Na+)
cuyas masas son coherentes, respectivamente, con los iones (M+H)+ y
(M+Na)+ de la micotoxina trichodermina (Figura 2; Nielsen et al., 2005). Este metabolito solo fue
detectado en los extractos de FCQ14, dado que el aislado FCQ14 presentó una
inhibición completa del crecimiento de ambos fitopatógenos en las condiciones
evaluadas, es posible sugerir que dicha actividad podría estar relacionada con
la producción del metabolito identificado.
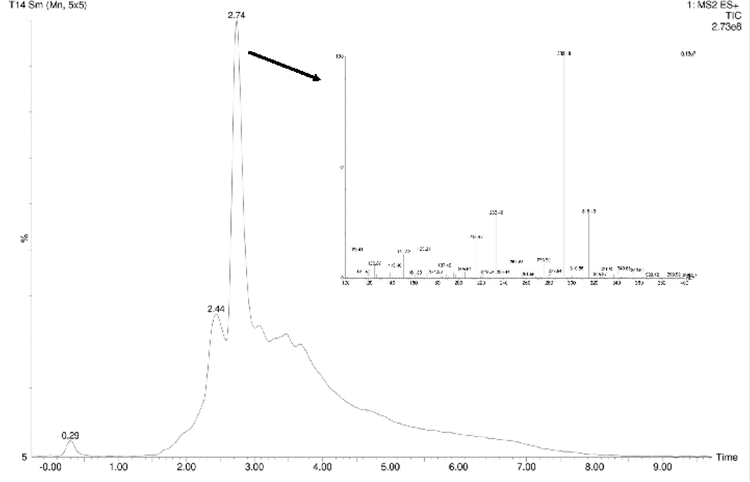
Figura
2.
Cromatograma UPLC-MS-ESI+ del extracto orgánico de Trichoderma sp.
FCQ14. Se muestra una expansión del espectro de masas del pico con tiempo de
retención 2,74 min.
La trichodermina ha demostrado
un amplio espectro de actividad antimicrobiana, incluyendo efectos notables
contra fitopatógenos como Rhizoctonia solani (Xu
et al., 2013), y contra hongos patógenos humanos relevantes como Candida
albicans y Aspergillus fumigatus (Tijerino
et al., 2011; Barúa et al., 2019), así como la capacidad de inhibir el
crecimiento de Trichophyton mentagrophytes, un dermatofito zoonótico de
importancia médica que afecta la piel de humanos y animales (Xiao et al., 2022).
Asimismo, se ha demostrado que posee actividad anticancerígena, al inducir
apoptosis, inhibir la proliferación, migración e invasión de células tumorales
(Gao et al., 2021; Chen et al., 2022; Lai et al., 2025). Su actividad
citotóxica frente a células eucariotas podría limitar su aplicación directa
como fungicida, lo que resalta la necesidad de evaluar su seguridad en
aplicaciones agrícolas y la importancia de estudios futuros que determinen
dosis seguras. Sin embargo, se ha logrado obtener derivados semisintéticos con
modificaciones estructurales que reducen de forma significativa su toxicidad
celular, sin perder eficacia antifúngica (Barúa et al., 2019). Esto abre la
posibilidad para el desarrollo de fungicidas basados en trichodermina que sean
más seguros y eficaces.
El
alto nivel de inhibición observado en los extractos orgánicos de Trichoderma
sp. FCQ14 y T. asperellum FCQ42 los posiciona como candidatos
prometedores para el desarrollo de fungicidas naturales. Este estudio
constituye la primera evidencia sobre la producción de moléculas con actividad
antifúngica en aislados de Trichoderma obtenidos de suelos paraguayos,
destacando su alto potencial para el desarrollo de productos antifúngicos con
un menor impacto ambiental.
Conclusiones
Se obtuvieron los extractos orgánicos de los ocho aislados nativos
paraguayos de Trichoderma spp. y se evaluó la actividad antifúngica
contra los aislados nativos de dos hongos fitopatógenos del pimiento. Trichoderma
sp. FCQ14 inhibió totalmente a ambos fitopatógenos, y en su extracto
orgánico se ha identificado un compuesto mayoritario, la micotoxina
trichodermina, como el posible antibiótico.
Agradecimientos:
Al
Dr. A. Sanabria-Velázquez, por su contribución con el aislamiento e
identificación de los microorganismos.
Contribución de autores: 1. Conceptualización: J.E.B,
M.E.F.G.; 2.Curación de datos: J.E.B., D.D.R.D.M.; 3.Análisis formal:
J.E.B., D.D.R.D.M., R.N.L.E., A.A.C.R.; 4.Adquisición de fondos: J.E.B.
;5.Investigación: D.D.R.D.M., R.N.L.E., A.A.C.R.; 6.Metodología:
J.E.B.,
D.D.R.D.M., R.N.L.E., A.A.C.R., M.E.F.G. ;7.Administración del
Proyecto: J.E.B.; 8.Recursos: ; 9.Software: ; 10.Supervisión:
J.E.B., M.C.R.R., M.E.F.G.; 11.Validación: M.C.R.R; 12.Visualización:
J.D.C.M., T.F.D., J.E.M.F.; 13.Redacción-borrador original: D.D.R.D.M.;
14.Redacción-revisión y edición: J.E.B., M.C.R.R.
Fuente
de Financiamiento: Este trabajo fue financiado por el Programa
PROCIENCIA con recursos del FEEI del FONACIDE, Paraguay (número de proyecto
14-INV-194).
Disponibilidad
de datos: Los datos que respaldan los resultados de este estudio están
disponibles del autor de correspondencia previa solicitud razonable. Correo
electrónico: javierbarua@qui.una.py.
Revisión
por pares: Este artículo fue evaluado mediante un proceso de
revisión por pares doble ciego.
Referencias
Bibliográficas
Ahluwalia, V., Kumar, J.,
Rana, V. S., Sati, O. P., & Walia, S. (2015). Comparative evaluation of
two Trichoderma harzianum strains for major secondary metabolite
production and antifungal activity. Natural Product Research, 29 (10),
914–920. https://doi.org/10.1080/14786419.2014.958739
Barúa, J. E., De la Cruz,
M., De Pedro, N., Cautain, B., Hermosa, R., Cardoza, R. E., Gutiérrez, S.,
Monte, E., Vicente, F., & Collado, I. G. (2019). Synthesis of trichodermin
derivatives and their antimicrobial and cytotoxic activities. Molecules,
24(20), 3811. https://doi.org/10.3390/MOLECULES24203811
Chen, H. L.,
Lo, Y. H., Lin, C. L., Lee, T. H., Leung, W., Wang, S. W., Lin, I. P., Lin, M.
Y., & Lee, C. H. (2022). Trichodermin inhibits the growth of oral cancer
through apoptosis-induced mitochondrial dysfunction and HDAC-2-mediated
signaling. Biomedicine & Pharmacotherapy, 153, 113351. https://doi.org/10.1016/J.BIOPHA.2022.113351
Chen, J., Ullah,
C., Reichelt, M., Beran, F., Yang, Z. L., Gershenzon, J., Hammerbacher, A.,
& Vassão, D. G. (2020). The phytopathogenic fungus Sclerotinia
sclerotiorum detoxifies plant glucosinolate hydrolysis products via an
isothiocyanate hydrolase. Nature Communications, 11(1). https://doi.org/10.1038/S41467-020-16921-2
Chen, J.,
Ullah, C., Reichelt, M., Gershenzon, J., & Hammerbacher, A. (2019). Sclerotinia
sclerotiorum circumvents flavonoid defenses by catabolizing flavonol glycosides
and aglycones. Plant Physiology, 180(4), 1975–1987. https://doi.org/10.1104/PP.19.00461
Cheng, X.,
Dai, T., Hu, Z., Cui, T., Wang, W., Han, P., Hu, M., Hao, J., Liu, P., &
Liu, X. (2022). Cytochrome P450 and glutathione S-transferase confer metabolic resistance
to SYP-14288 and multi-drug resistance in Rhizoctonia solani. Frontiers in Microbiology, 13, 806339. https://doi.org/10.3389/FMICB.2022.806339
Cortez-Lázaro, A. A.,
Vázquez-Medina, P. J., Caro-Degollar, E. M., García Evangelista, J. V.,
Cortez-Lázaro, R. A., Rojas-Paz, J. L., Legua-Cardenas, J. A., Fernandez-Herrera,
F., Pesantes-Rojas, C. R., Ocrospoma-Dueñas, R. W., Oliva-Cruz, S. M.,
Manes-Cangana, G. A., Romero Bozzetta, J. L., & Leiva Espinoza, S. T.
(2025). Global
trends in Trichoderma secondary metabolites in sustainable agricultural
bioprotection. Frontiers
in Microbiology,
16, 1595946. https://doi.org/10.3389/FMICB.2025.1595946
Cubilla-Ríos, A. A.,
Ruíz-Díaz-Mendoza, D. D., Romero-Rodríguez, M. C., Flores-Giubi, M. E., &
Barúa-Chamorro, J. E. (2019). Antibiosis of proteins and metabolites of three
species of Trichoderma against paraguayan isolates of Macrophomina
phaseolina. Agronomía Mesoamericana, 30(1), 63–77. https://doi.org/10.15517/AM.V30I1.34423
El-Kazzaz, M.
K., Ghoneim, K. E., Agha, M. K. M., Helmy, A., Behiry, S. I., Abdelkhalek, A.,
Saleem, M. H., Al-Askar, A. A., Arishi, A. A., & Elsharkawy, M. M. (2022).
Suppression of pepper root rot and wilt diseases caused by Rhizoctonia
solani and Fusarium oxysporum. Life, 12(4). https://doi.org/10.3390/LIFE12040587
Erper, I.,
Özer, G., Zholdoshbekova, S., Yildirim, E., & Turkkan, M. (2021). First
report of Rhizoctonia solani AG 4 HG-III causing root rot of pepper in
Kyrgyzstan. Journal of Plant Pathology, 103(1), 359. https://doi.org/10.1007/S42161-020-00681-5
Frimpong, G.
K., Adekunle, A. A., Ogundipe, O. T., Solanki, M. K., Sadhasivam, S., &
Sionov, E. (2019). Identification and toxigenic potential of fungi isolated
from Capsicum peppers. Microorganisms, 7(9), 303. https://doi.org/10.3390/MICROORGANISMS7090303
Gao, Y.,
Miles, S. L., Dasgupta, P., Rankin, G. O., Cutler, S., & Chen, Y. C.
(2021). Trichodermin induces G0/G1 cell cycle arrest by inhibiting C-MYC in
ovarian cancer cells and tumor xenograft-bearing mice. International Journal
of Molecular Sciences, 22(9), 5022. https://doi.org/10.3390/IJMS22095022
Gibbs, J. N.
(1967). A Study of the Epiphytic Growth Habit of Fomes annosus. Annals
of Botany, 31(4), 755–774. https://doi.org/10.1093/OXFORDJOURNALS.AOB.A084180
Guzmán-Guzmán,
P., Etesami, H., & Santoyo, G. (2025). Trichoderma: a
multifunctional agent in plant health and microbiome interactions. BMC Microbiology
2025 25, 1, 25(1), 1–17. https://doi.org/10.1186/S12866-025-04158-2
Hewedy, O. A.,
Abdel-Lateif, K. S., & Bakr, R. A. (2020). Genetic diversity and biocontrol
efficacy of indigenous Trichoderma isolates against Fusarium wilt of
pepper. Journal of Basic Microbiology, 60(2), 126–135. https://doi.org/10.1002/JOBM.201900493
Hewedy, O. A.,
Abdel Lateif, K. S., Seleiman, M. F., Shami, A., Albarakaty, F. M., &
El-Meihy, R. M. (2020). Phylogenetic Diversity of Trichoderma strains
and their antagonistic potential against soil-borne pathogens under stress conditions.
Biologyv 2020. 9 (8), 189. https://doi.org/10.3390/BIOLOGY9080189
Jambhulkar, P.
P., Singh, B., Raja, M., Ismaiel, A., Lakshman, D. K., Tomar, M., & Sharma,
P. (2024). Genetic diversity and antagonistic properties of Trichoderma
strains from the crop rhizospheres in southern Rajasthan, India. Scientific Reports, 14(1). https://doi.org/10.1038/S41598-024-58302-5
Jiménez-Pérez, O.,
Gallegos-Morales, G., Hernández-Castillo, F. D., Cepeda-Siller, M.,
Espinoza-Ahumada, C. A. (2022). Characterization and pathogenicity of a Pythium
aphanidermatum isolate causing ‘damping off’ in pepper seedlings. Revista Mexicana de
Fitopatología,
40(1), 116–130. https://doi.org/10.18781/R.MEX.FIT.2109-3
Joo, J. H.,
& Hussein, K. A. (2022). Biological control and plant growth promotion properties
of volatile organic compound-producing antagonistic Trichoderma spp. Frontiers
in Plant Science, 13, 897668. DOI: 10.3389/fpls.2022.897668
Katsumata, S.,
Toshima, H., & Hasegawa, M. (2018). Xylosylated detoxification of the rice flavonoid
phytoalexin sakuranetin by the rice sheath blight fungus Rhizoctonia solani.
Molecules, 23(2), 276. https://doi.org/10.3390/MOLECULES23020276
Lai, C. T.,
Hsieh, Y. H., Wang, Y. H., Chang, K. F., Sun, W. C., Yu, C. L., Lee, T. H.,
Wang, S. W., & Lin, C. L. (2025). Trichodermin, an endophytic fungal
sesquiterpene, suppresses colorectal cancer cell migration and invasion by
targeting the PKC-ERK-Sp1-CTSV axis. Phytomedicine, 145, 157063. https://doi.org/10.1016/J.PHYMED.2025.157063
Liu, Y., He,
P., He, P., Munir, S., Ahmed, A., Wu, Y., Yang, Y., Lu, J., Wang, J., Yang, J.,
Pan, X., Tian, Y., & He, Y. (2022). Potential biocontrol efficiency of Trichoderma
species against oomycete pathogens. Frontiers in Microbiology, 13,
974024. https://doi.org/10.3389/FMICB.2022.974024
Mao, T., Chen,
X., Ding, H., Chen, X., & Jiang, X. (2020). Pepper growth promotion and Fusarium
wilt biocontrol by Trichoderma hamatum MHT1134. Biocontrol Science
and Technology, 30(11), 1228–1243. https://doi.org/10.1080/09583157.2020.1803212
Mirsam, H.,
Suriani, Kurniawati, S., Purwanto, O. D., Muis, A., Pakki, S., Tenrirawe, A.,
Nonci, N., Herawati, Muslimin, & Azrai, M. (2023). In vitro inhibition
mechanism of Trichoderma asperellum isolates from corn against Rhizoctonia
solani causing banded leaf and sheath blight disease and its role in
improving the growth of corn seedlings. Egyptian Journal of Biological Pest
Control, 33(1), 1–14. https://doi.org/10.1186/S41938-023-00729-5
Nielsen, K.
F., Gräfenhan, T., Zafari, D., & Thrane, U. (2005). Trichothecene
production by Trichoderma brevicompactum. Journal of Agricultural and
Food Chemistry, 53(21), 8190–8196. https://doi.org/10.1021/JF051279B
Pedras, M. S.
C., & Hossain, M. (2006). Metabolism of crucifer phytoalexins in Sclerotinia
sclerotiorum: detoxification of strongly antifungal compounds involves
glucosylation. Organic & Biomolecular Chemistry, 4(13),
2581–2590. https://doi.org/10.1039/B604400J
Pedras, M. S.
C., & Khan, A. Q. (2000). Biotransformation of the phytoalexin camalexin by
the phytopathogen Rhizoctonia solani. Phytochemistry, 53(1), 59–69. https://doi.org/10.1016/S0031-9422(99)00479-3
Pérez-Hernández, A.,
Serrano-Alonso, Y., Aguilar-Pérez, M. I., Gómez-Uroz, R., & Gómez-Vázquez,
J. (2014). Damping-off
and root rot of pepper caused by Fusarium oxysporum in Almería Province,
Spain. Plant Disease, 98(8), 1159. https://doi.org/10.1094/PDIS-02-14-0212-PDN
Raffa, C. M.,
& Chiampo, F. (2021). Bioremediation of agricultural soils polluted with pesticides:
A Review. Bioengineering, 8(7), 92. https://doi.org/10.3390/BIOENGINEERING8070092
Salvatore, M.
M., Masi, M., DellaGreca, M., & Andolfi, A. (2025). The phytopathogenic
fungus Macrophomina phaseolina: a potential resource for biosynthesis
and biotransformation of bioactive compounds. Phytochemistry Reviews,
1431–1464. https://doi.org/10.1007/S11101-025-10168-9
Sanabria
Velázquez, A. D. (2020). Evaluación
de aislados de Trichoderma spp. nativos del Paraguay para el control de Colletotrichum
spp. causante de la antracnosis en frutilla. Investigación Agraria, 22(1),
53–62. https://doi.org/10.18004/INVESTIG.AGRAR.2020.JUNIO.53-62
Sanabria-Velázquez, A.
D., Bittar-Vega, H. K., Montiel, G., Cantero, F., Britos, R., Ortiz, C., &
Sarubbi-Orué, H. J. (2025). Biological control of Sclerotium rolfsii
Sacc. in Stevia rebaudiana using native isolates of Trichoderma
spp. from Paraguay. Agronomía
Colombiana,
43(1), e117744. https://doi.org/10.15446/agron.colomb.v43n1.117744
Sanabria-Velázquez, A.
D., Pavía, M. M. F., Ayala, L. I., Flores-Giubi, M. E., Romero-Rodríguez, M.
C., Sotelo, P. H., & Barúa, J. E. (2023). Characterization of Trichoderma
species from agricultural soils of Paraguay. Agronomía Colombiana, 41(3),
e111299. https://doi.org/10.15446/agron.colomb.v41n3.111299
Sánchez-Montesinos, B.,
Diánez, F., Moreno-Gavira, A., Gea, F. J., & Mila Santos, M. (2019). Plant growth promotion
and biocontrol of Pythium ultimum by saline tolerant Trichoderma isolates
under salinity stress. International Journal of Environmental Research and
Public Health 2019, 16 (11). https://doi.org/10.3390/IJERPH16112053
Savary, S.,
Willocquet, L., Pethybridge, S. J., Esker, P., McRoberts, N., & Nelson, A.
(2019). The global burden of pathogens and pests on major food crops. Nature
Ecology and Evolution, 3(3), 430–439. https://doi.org/10.1038/S41559-018-0793-Y
Stange, P.,
Kersting, J., Sivaprakasam Padmanaban, P. B., Schnitzler, J. P., Rosenkranz,
M., Karl, T., & Benz, J. P. (2024). The decision for or against
mycoparasitic attack by Trichoderma spp. is taken already at a distance
in a prey-specific manner and benefits plant-beneficial interactions. Fungal Biology and
Biotechnology, 11
(14), 1–23. https://doi.org/10.1186/S40694-024-00183-4
Tijerino, A., Elena
Cardoza, R., Moraga, J., Malmierca, M. G., Vicente, F., Aleu, J., Collado, I.
G., Gutiérrez, S., Monte, E., & Hermosa, R. (2011). Overexpression
of the trichodiene synthase gene tri5 increases trichodermin production and
antimicrobial activity in Trichoderma brevicompactum. Fungal Genetics
and Biology, 48(3), 285–296. https://doi.org/10.1016/j.fgb.2010.11.012
Tudi, M.,
Ruan, H. D., Wang, L., Lyu, J., Sadler, R., Connell, D., Chu, C., & Phung,
D. T. (2021). Agriculture development, pesticide application and its impact on
the environment. International Journal of Environmental Research and Public
Health, 18(3), 1112. https://doi.org/10.3390/IJERPH18031112
Vinale, F., Marra, R.,
Scala, F., Ghisalberti, E. L., Lorito, M., & Sivasithamparam, K. (2006). Major
secondary metabolites produced by two commercial Trichoderma strains
active against different phytopathogens. Letters in Applied Microbiology,
43(2), 143–148. https://doi.org/10.1111/J.1472-765X.2006.01939.X
Vinale, F.,
Sivasithamparam, K., Ghisalberti, E. L., Marra, R., Woo, S. L., & Lorito,
M. (2008). Trichoderma–plant–pathogen interactions. Soil Biology and
Biochemistry, 40(1), 1–10. https://doi.org/10.1016/J.SOILBIO.2007.07.002
Vinale, F.,
Sivasithamparam, K., Ghisalberti, E. L., Woo, S. L., Nigro, M., Marra, R.,
Lombardi, N., Pascale, A., Ruocco, M., Lanzuise, S., Manganiello, G., &
Lorito, M. (2014). Trichoderma secondary metabolites active
on plants and fungal pathogens. The Open Mycology Journal, 8(1),
127–139. https://doi.org/10.2174/1874437001408010127
Vizcaíno, J. A., Sanz,
L., Cardoza, R. E., Monte, E., & Gutiérrez, S. (2005). Detection of
putative peptide synthetase genes in Trichoderma species: Application of
this method to the cloning of a gene from T. harzianum CECT 2413. FEMS
Microbiology Letters, 244(1), 139–148. https://doi.org/10.1016/J.FEMSLE.2005.01.036
Wang, Y.,
Zeng, L., Wu, J., Jiang, H., & Mei, L. (2022). Diversity and effects of
competitive Trichoderma species in Ganoderma lucidum–cultivated
soils. Frontiers in Microbiology, 13, 1067822. https://doi.org/10.3389/FMICB.2022.1067822
Xiao, C., Li,
L., Liu, Y., Huang, Y., Wang, Y., Wang, J., Bao, G., Sun, G., & Lin, F.
(2022). Inhibitory effect and mechanism of Trichoderma taxi and its metabolite
on Trichophyton mentagrophyte. Journal of Fungi, 8(10), 1006. https://doi.org/10.3390/JOF8101006
Xu, X., Cheng,
J., Zhou, Y., Zhang, C., Ou, X., Su, W., Zhao, J., & Zhu, G. (2013).
Synthesis and antifungal activities of trichodermin derivatives as fungicides
on rice. Chemistry and Biodiversity, 10(4), 600–611. https://doi.org/10.1002/CBDV.201200135
Yanar, Y.,
& Miller, S. A. (2003). Resistance of pepper cultivars and accessions of Capsicum
spp. to Sclerotinia sclerotiorum. Plant Disease, 87(3),
303–307. https://doi.org/10.1094/PDIS.2003.87.3.303
Zhang, J. L.,
Tang, W. L., Huang, Q. R., Li, Y. Z., Wei, M. L., Jiang, L. L., Liu, C., Yu,
X., Zhu, H. W., Chen, G. Z., & Zhang, X. X. (2021). Trichoderma: a treasure
house of structurally diverse secondary metabolites with medicinal importance. Frontiers
in Microbiology, 12, 723828. https://doi.org/10.3389/FMICB.2021.723828
Zhang, F., Ge,
H., Zhang, F., Guo, N., Wang, Y., Chen, L., Ji, X., & Li, C. (2016).
Biocontrol potential of Trichoderma harzianum isolate T-aloe against Sclerotinia
sclerotiorum in soybean. Plant Physiology and Biochemistry, 100,
64–74. https://doi.org/10.1016/j.plaphy.2015.12.017
Material suplementario
Lista de
datos complementarios
Figura
S1. Cromatografía en capa delgada
de los extractos orgánicos crudos de Trichoderma spp.
Figura S2. Cromatogramas
UPLC-PDA de los extractos orgánicos crudos de Trichoderma spp.
Los materiales complementarios podrán ser
consultados en línea o solicitar al autor según pertinencia a Ruiz
Diaz Mendoza, D. D., Lezcano Escobar, R. N., Cubilla-Ríos, A. A.,
Romero Rodríguez, M. C., Flores-Giubi, M. E. y Barúa, J. B.
(2026). Material suplementario. https://1drv.ms/b/c/f2c9eef33bce23b3/IQC2rP5fFI0rRaNUbBA6N5VQAWMQdgaC8gtZJdLDEjT8IxU?e=ZlqukR
 , Romina Nathalia Lezcano Escobar1, Alberto Anastacio
Cubilla-Ríos1
 , Universidad Nacional de
Asunción (UNA). Centro Multidisciplinario de Investigaciones Tecnológicas
(CEMIT). San Lorenzo, Paraguay.
